

Идентифициране на реагиращи на водороден пероксид ESTs, участващи в биосинтезата на фенилетаноидни гликозиди в клетъчна култура Cistanche Salsa
Mar 17, 2022
Контакт: Audrey Hu Whatsapp/hp: 0086 13880143964 Имейл:audrey.hu@wecistanche.com
J. CHEN и др
Резюме
Водородният пероксид е ефективен абиотичен стимулатор, който може да индуцира биосинтеза на вторичен метаболит в растенията. Ние показваме, че в културата на клетъчна суспензия на устойчиво на сол лечебно растениеЦистанчесалса, производството на биоактивни компонентифенилетаноидгликозиди(PeGs) се повишава след третиране с H2O2. За идентифициране на гени, свързани с PeGs(фенилетаноидгликозиди)биосинтеза, засегната от H2O2, ние конструирахме библиотека за супресивна субтрактивна хибридизация на H2O2 реагиращи гени, използвайкиЦистанчесалсаклетъчна линия и идентифицира 105 експресирани секвенционни маркера (EST) и 85 гена. Функционалната анотация на библиотеката EST и анализите на генната онтология показват гени, свързани с различни реакции на стрес, биосинтеза на вторични метаболити и транскрипционна регулация. Сред тях идентифицирахме два гена, свързани с PeGs(фенилетаноидгликозиди)път на биосинтеза (4-кумарат коензим А лигаза и цинамат 4-хидроксилаза) и два транскрипционни фактора тип WRKY. Експресиите на избрани гени след лечението с H2O2 бяха анализирани чрез RT-qPCR. Ранно повишена транскрипция на PeG(фенилетаноидгликозиди)гените на пътя на биосинтезата след лечението разкриха, че H2O2 индуцира PeGs(фенилетаноидгликозиди)биосинтеза чрез регулиране нагоре на неговите ключови гени.
Допълнителни ключови думи: цинамат-4-хидроксилаза, 4-кумарат коензим А лигаза, супресивна субтрактивна хибридизация.Цистанчесалса. фенилетаноидгликозиди.

Въведение
Цистанчесалсае многогодишно растение, паразитиращо върху корена на Haloxylos ammodendrun, и расте в пустинната зона на западен Китай. За векове,ЦистанчеВидът се използва като традиционна билкова медицина (Wang et al. 2012). Биоактивните компоненти сафенилетаноидгликозиди(PeGs), които имат забележителен ефект върху клирънса на реактивни кислородни видове (ROS), защита от радиация, повишаване на имунитета и предотвратяване на стареенето (Nan et al. 2013). PeGs(фенилетаноидгликозиди)биосинтеза вЦистанчесе инициира от фенилаланин (фиг. 1 Suppl.) и синтезираната кафеена киселина се гликозилира допълнително, за да образува различни PeGs(фенилетаноидгликозиди)(Wang et al. 2012). Три основни PeG(фенилетаноидгликозиди), ехинакозид, актеозид и 2'-ацетилактеозид се считат за най-активните компоненти вЦистанче(Kobayashi et al. 1984). За да се подобри тяхното съдържание вЦистанчеклетъчна култура са тествани различни елиситори, включително хитозан, путресцин, Ag plus и осмотичен стрес (Ouyang et al. 2005a,b, Cheng et al. 2005, 2006, Liu et al. 2007, Liu and Cheng 2008). Въпреки това, гените, участващи в PeGs(фенилетаноидгликозиди)биосинтеза вЦистанче, главно гени на пътя на метаболизма на фенилаланин, рядко са идентифицирани. Само ген, кодиращ фенилаланин амонячна лиаза (PAL), наскоро беше идентифициран в Cistanche deserticola (Hu et al. 2011). Други гени, кодиращи, например, цинамат-4-хидроксилаза (C4H), която може да катализира превръщането на цинамат в кумарова киселина, и 4-кумарат коензим А лигаза (4CL), основен ген за лигнин и флаваноиди биосинтези, не са открити вЦистанче.
Използвахме клетъчната култура наЦистанчесалсаза изучаване на PeGs(фенилетаноидгликозиди)биосинтеза и експресия на свързани гени. Ние също така изследвахме ефекта на ефективен елиситор H2O2 върху PeGs(фенилетаноидгликозиди)биосинтеза. Освен това, за намиране на ранни отзивчиви гени, включени в PeGs(фенилетаноидгликозиди)биосинтеза, ние проведохме субтрактивна супресивна хибридизация (SSH), за да конструираме cDNA библиотека от H2O2-чувствителни гени.

Фигура 1. Относителна генна експресия, определена чрез RT-qPCR след третиране с H2O2. CsWRKY1 - WRKY транскрипционен фактор (Contig07), CsC4H1 - цинамат 4-хидроксилаза (Contig09), Cs4CL1 - 4-кумарат: лигаза (Contig03), CsHSP1 - протеин на топлинен шок 70 kDa (Contig 01) и CsSOD1 - супероксид дисмутаза (Contig16). Клетките бяха третирани с 80 ug dm-3 H2O2 в течна среда за 2 часа и експресиите бяха сравнени с контрола, третирана с вода. Означава плюс - SD от три биологични повторения; * - P < 0,05,="" **="" -="" p=""><>
Материали и методи
Клетъчната линия CS2001 е създадена от венчелистчета наЦистанчесалса(CA Mey.) Бек, събран в провинция Neimenggu и субкултивиран. Методът на култура е подобен на протокол, публикуван по-рано (Liu et al. 2007). Като цяло, твърда среда Murashige и Skoog (1962; MS) се използва за субкултура и течна среда за PeGs(фенилетаноидгликозиди)биосинтеза (това беше модифицираната MS среда, допълнена с 30 g dm-3 глюкоза и 2.0 mg dm-3 индол-3-оцетна киселина). За третиране с H2O2, 5.0 ± 0,2 g клетки в период на бърз растеж, обикновено 20 до 30 дни след субкултивирането им в твърдата среда, се инокулират в 50 cm3 течна среда в 250 cm3 Ерленмайерова колба и се култивират на тъмно с или без различни концентрации на H2O2. PeGs(фенилетаноидгликозиди)съдържанието след 10 d индукция с H2O2 се анализира съгласно метод, публикуван по-рано (Liu et al. 2007), базиран на високоефективна течна хроматография с обратна фаза с градиентно елуиране на метанол.
Клетките 2 часа след третирането с H2O2 се събират от средата чрез филтърна хартия с помощта на фуния на Бюхнер и след това се замразяват в течен азот и се смилат на прах. Всеки 2 g клетъчен прах се лизира с помощта на смес от 1 cm3 2-меркаптоетанол, 1 cm3 от 200 g dm{{10}} саркозил, и 8 cm3 GTC буфер (5 М гуанидиниев изотиоцианат, 62.5 mM Tris-HCl, рН 8.0, 6.25 mM EDTA, рН 8.0, 5 mM тиоурея и 10 mM дитиотреитол). След това клетките се инкубират върху лед за 15 минути, след това се добавя 1/3 обем от 8,5 М CH3COOK, рН 6,0, и клетките се инкубират върху лед за 15 минути и след това се центрофугират при 15 000 g за 15 минути . Супернатантата се добавя към равен обем изопропанол, за да се утаи общата РНК. Общата РНК беше допълнително пречистена с мини комплект RNeasy (Qiagen, Hilden, САЩ) съгласно инструкциите на производителя. Messenger RNA се изолира от общата RNA с помощта на Oligotex mRNA midi kit (Qiagen).

фенилетаноидгликозидивЦистанчеСалса
SSH библиотека беше генерирана от контролни и 30 процента H2O2-извлечени клетъчни проби 2 часа след извличането, като се използва PCR-select cDNA комплект за изваждане (Clontech, Mountain View, САЩ). За изграждане на библиотека, продуктите бяха пречистени отделно с помощта на комплект за пречистване на гел (Qiagen) и клонирани в pGEM вектор с помощта на комплект за клониране на TA (Tiangen, Пекин, Китай). Плазмиди от независими клонове бяха изолирани и секвенирани с помощта на Т7 праймер. Всички експресирани секвенционни маркери (EST) последователности от библиотеката (с премахнати векторни последователности) бяха използвани за contig сглобяване с CAP3 (//doua.prabi.fr/software/cap3). EST бяха групирани в contigs и singletons; те бяха използвани за търсене на хомология с помощта на програмата BLASTx в NCBI (http://blast.ncbi.nlm.nih.gov). След това последователностите бяха анотирани, анализирани и класифицирани според термините на генната онтология (GO), използвайки Blast2GO (http://www.blast2go.com).
Количествената полимеразна верижна реакция в реално време (RT-qPCR) се извършва съгласно Bustin et al. (2009). cDNA пробите се синтезират с помощта на комплект реактиви PrimeScript RT (Takara, Dalian, Китай) от 0.5 ug обща РНК. RT-qPCR се провежда с помощта на SYBR Premix Ex Taq II и ROX плюс комплекти (Takara) на ABI 7300 PCR система в реално време (Applied Biosystems, Foster City, САЩ) с три технически повторения. Праймерите са проектирани с помощта на онлайн софтуера Primer3 съгласно инструкциите, предоставени от Takara; праймерите, използвани в това изследване, са изброени в Таблица 1 Suppl. Генните експресии бяха нормализирани до 18S РНК, експресията на която беше стабилна във всички проби.
Резултатите бяха анализирани с помощта на R версия 3.1.1, значимостта на разликите беше проверена чрез t-теста на Student.

Резултати
Водороден пероксид индуцира биосинтезата и на трите основни PeG(фенилетаноидгликозиди)вЦистанчесалсасуспензионни клетки (Таблица 1), но без очевиден ефект върху клетъчния растеж (Фиг. S2). Съдържанието на ехинакозид се повишава вече след третиране с 10 ug dm-3 H2O2 (P < 0.05),="" по-високо="" увеличение="" се="" регистрира="" след="" 20="" ug="" dm-3="" -3="" лечение="" с="" h2o2="" (p=""><0,01), като="" най-голямото="" увеличение="" е="" след="" третирането="" с="" 40,="" 80="" и="" 160="" ug="" dm-3="" h2o2.="" подобни="" резултати="" са="" показани="" за="" актеозид,="" но="" съдържанието="" му="" достига="" пик="" след="" третиране="" с="" 80="" ug="" dm-3="" h2o2.="" биосинтезата="" на="" 2'-ацетилактеозид="" е="" по-малко="" чувствителна="" към="" третиране="" с="" h2o2;="" значително="" увеличение="" на="" съдържанието="" му="" (p=""><0,05) е="" при="" концентрации="" на="" h2o2="" над="" 40="" ug="" dm-3.="" след="" третирането="" с="" 80="" ug="" dm-3="" h2o2,="" количеството="" на="" трите="" основни="">(фенилетаноидгликозиди)значително увеличен (P < 0.01)="" спрямо="" контролата.="" следователно="" тази="" концентрация="" беше="" използвана="" в="" по-нататъшни="">
За да генерираме библиотека, обогатена за ранно реагиращи гени, които се регулират нагоре от H2O2, използвахме cDNA отЦистанчесалсасуспензионни клетки, третирани с 80 ug dm-3 H2O2 за 2 часа. Еднопроходно секвениране на 129 рекомбинантни клона в SSH библиотеката даде 105 чисти EST след изключване на векторна последователност. Тези ясни EST бяха използвани за сглобяване от CAP3 и бяха генерирани 18 контига и 67 сингълтона (Таблица 2). Така в тази библиотека са изолирани 85 гена. Средната дължина на чистите 105 EST е 527 bp, което е адекватно за функционална класификация, базирана на подобие на последователност.


фенилетаноидгликозидивЦистанчеСалса
Всичките 85 гена, получени в библиотеката, бяха извлечени от BLASTx срещу нередундантната протеинова база данни на GenBank за сходство на последователности (E-стойност По-малка или равна на 0.001). Двадесет и един гена не показаха попадения в базата данни, може да са специфични заЦистанчесалса. Резултатите с BLASThits бяха импортирани в софтуера Blast2GO за по-нататъшни анализи на обогатяване на пътя на GO и KEGG. От 64 гена с BLAST хитове, 50 са анотирани според описанието на хомоложни гени от други видове. Коментираните гени бяха наименувани според описанието на BLAST ударите. GO анализът (фиг. 3 Suppl.) показва, че сред тези 50 гена има 14 гена, участващи в отговорите на стимули, и над 30 гена, свързани с метаболитните процеси (таблици 1 и 2). Сред тези гени, както се очакваше, бяха изолирани два генни хомолоза на пътя на биосинтезата на PeG: 4-кумарат коензим А лигаза (наречена Cs4CL1: Contig03) и цинамат 4-хидроксилаза (наречена CsC4H1: Contig14). Освен това се извършва RT-qPCR за потвърждаване на индуцирани експресии на гени от библиотеката след третирането с H2O2.
За да се потвърди, че основните гени, идентифицирани от SSH библиотеката, реагират на лечението с H2O2, изразите на два PeGs(фенилетаноидгликозиди)гени, свързани с пътя на биосинтезата (Cs4CL1, CsC4H1), два гена, индуцирани от ROS (CsSOD1: Contig 16, CsHSP1: CISTH099), и един ген, подобен на транскрипционен фактор от семейството на WRKY (CsWRKY1: Contig 07) бяха измерени чрез RT-qPCR след лечението с H2O2 (фиг. 1). Експресиите на CsC4H1, Cs4CL1, CsSOD1 и CsWRKY1 бяха регулирани нагоре повече от 15-кратно, 3-кратно, 45-кратно и 4-кратно, съответно 2 часа след H2O2 лечение. Експресията на CsHSP1 се променя само 1.8 пъти след третирането с H2O2.
Времевият ход на експресиите на CsWRKY1, CsC4H1 и Cs4CL1 след третирането с H2O2 беше допълнително анализиран чрез RT-qPCR (фиг. 2). Експресиите на CsC4H1 и Cs4CL1 бяха силно повишени (повече от 80-кратно и 50-кратно, съответно) след 16-h лечение и след това регулирани надолу след 32 часа. Експресията на CsWRKY1 беше регулирана нагоре повече от 20-кратно на 4 часа и след това намаля от 8 часа след това (фиг. 2).
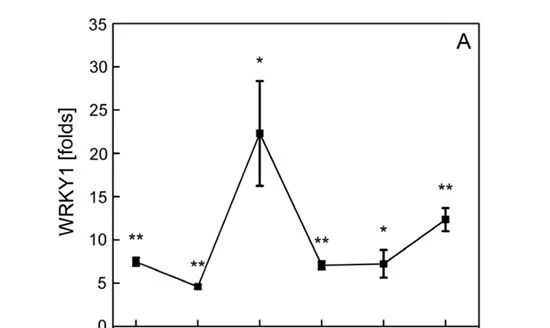


Фиг. 2. Относителната експресия на CsWRKY1 (A), CsC4H1 (B) и Cs4CL1 (C) в различно време след третиране с 80 ug dm-3 H2O2. Изразите бяха нормализирани до контрола; (третирани с вода). Означава плюс - SD от три биологични повторения; * - P < 0.05,="" **="" -="" p=""><>
Дискусия
Водородният пероксид е добре известен растителен стимулатор, който показва различни ефекти върху растенията. Подобно на ROS, той може да индуцира системата за почистване на ROS, съставена от супероксид дисмутаза, каталаза, пероксидази и т.н., и служи като сигнал надолу по веригата за сол, осмотична и дехидратация
напрежения (Wi et al. 2006, Kar 2011, Furlan et al. 2013, Sathiyaraj et al. 2014). Предполага се, че генерирането на H2O2 в растенията е придружено от индуцирана вторична метаболитна биосинтеза вЦистанчесалсаклетъчна култура. Както се очакваше, нашите резултати разкриват, че PeGs(фенилетаноидгликозиди)биосинтеза вЧистанче салсаклетъчна култура беше индуцирана след третиране с H2O2 (Таблица 1). Съдържанието на три основни PeG(фенилетаноидгликозиди)се увеличава след третирането с H2O2, което показва неговата основна роля в биосинтезата на PeGs. Гените, обогатени в SSH библиотеката, допълнително предполагат нейния ефект върху PeGs(фенилетаноидгликозиди)индукция на биосинтеза вЧистанче салса.
Много известни гени, реагиращи на H2O2-, като аскорбат пероксидаза (CISTH069, Karyotou and Donaldson 2005), h-хинон оксидоредуктаза (CISTH125, Bello, et al. 2001), CsSOD1, CsHSP1 (Baruah et al. 2014), и гени за реакция на резистентност към заболяване (Contig10, Nanda, et al. 2010), бяха обогатени в SSH библиотеката (Таблица 3, Таблица 2 Допълнение). Някои от тези типични ROS реагиращи гени с индуцирана експресия след лечението с H2O2 бяха допълнително потвърдени от RT-qPCR (Фигури 1 и 2), което показва, че тук е конструирана квалифицирана SSH библиотека. Два гена на пътя на биосинтезата на PeG, CsC4H1 и Cs4CL1, също бяха открити в тази библиотека и тези две генни експресии бяха индуцирани от лечението с H2O2 по зависим от времето начин (фиг. 2). Това предполага, че лечението с H2O2 е предизвикало PeGs(фенилетаноидгликозиди)биосинтеза на генетично ниво чрез регулиране на гените на пътя на PAL. Въпреки това, PAL и други гени за биосинтеза на PeGs надолу по веригата (Wang et al. 2012) не са идентифицирани в SSH библиотеката; може да се дължи на това, че библиотеката не е секвенирана достатъчно. Връзката между CsC4H1 и Cs4CL1 индуцираните експресии и повишената биосинтеза на PeGs след лечението с H2O2 трябва да бъде изяснена чрез допълнителен анализ.

В допълнение към гените на PAL пътя, индуцирани от лечението с H2O2, два транскрипционни фактора от фамилията WRKY (CsWRKY1, CsWRKY2) бяха открити в SSH библиотеката (Таблица 3 и Таблица 2 Допълнение) и индуцирана от CsWRKY1 експресия беше потвърдена от RT-qPCR . Неговата експресия реагира на лечението с H2O2 по-рано от експресията на два гена на PAL пътя, Cs4CL1 и CsC4H1 (фиг. 2). От предишни проучвания, ко-експресия на някои WRKY транскрипционни фактори и гени на PAL пътя е наблюдавана в ориза (Gupta et al. 2012). Освен това, PAL генната експресия е регулирана нагоре в OsWRKY03 мутант със свръхекспресия (Liu et al. 2005). Гореспоменатите два транскрипционни фактора от семейството на WRKY могат също да бъдат включени в PeGs(фенилетаноидгликозиди)биосинтеза вЦистанчесалса. Интересното е, че свързаните с дехидратацията ESTs (CISTH067, CISTH064) бяха открити в SSH библиотеката, което може да предполага, че лечението с H2O2 е свързано с експресията на гени, реагиращи на дехидратация вЦистанчесалсакакто се наблюдава при други растения (Schmidt et al. 2013, Zhou et al. 2013). Един ген, свързан с сигнализацията на гиберелин (GA), подобен на рецептор на гиберелин gid1b (CISTH092), беше идентифициран в SSH библиотеката, което предполага връзката на сигнализацията на GA и лечението с H2O2 вЦистанчесалса, което също се съобщава в ечемик (Bahin et al. 2011). Въпреки това са необходими повече изследвания, за да се потвърди дали тези гени са свързани с PeGs(фенилетаноидгликозиди)биосинтеза. Освен споменатите по-горе гени, SSH библиотеката, конструирана тук, също представя гени със или без BLAST попадения. Той подобрява нашето разбиране за ефекта на H2O2 върху C. salsa и първо предоставя информация за неговите гени, участващи в биосинтезата на PeGs.

В заключение, ние оценихме ефекта на H2O2 върху PeGs(фенилетаноидгликозиди)индукция вЦистанчесалсаклетъчна култура. SSH библиотеката беше конструирана след третирането с H2O2 и експресията на избрани гени беше потвърдена чрез RT-qPCR. Бяха идентифицирани два гена, свързани с пътя на биосинтеза на PeG, и други гени, реагиращи на H2O2-. Тези открития ще разширят нашето разбиране за H2O2-индуцирани PeGs(фенилетаноидгликозиди)биосинтеза вЦистанчесалсана молекулярно ниво, предоставяйки информацията за генна манипулация наЦистанчесалсаклетъчни култури за подобряване на PeGs(фенилетаноидгликозиди)производство.
От: „Идентифициране на реагиращи на водороден пероксид EST, участващи в биосинтезата на фенилетаноидни гликозиди в клетъчна култура на Cistanche salsa“ отJ. CHEN и др.
--- BIOLOGIA PLANTARUM 59 (4): 695-700, 2015 J. CHEN et al. DOI: 10.1007/s10535-015-0541-y
Препратки
Bahin, E., Bailly, C., Sotta, B., Kranner, I., Corbineau, F., Leymarie, J.: Връзката между реактивните кислородни видове и хормоналните сигнални пътища регулира латентността на зърното в ечемика. - растителна клетъчна среда. 34: 980-993, 2011 г.
Baruah, K., Norouzitallab, P., Linayati, L., Sorgeloos, P., Bossie, r P.: Реактивните кислородни видове, генерирани от продукт, предизвикващ топлинен шок протеин (Hsp), допринасят за производството на Hsp70 и Hsp{{1} }медииран защитен имунитет в Artemia franciscana срещу патогенни вибриони. - Дев. Comp. Immunol. 46: 470-479, 2014 г.
Bello, RI, Gomez-Diaz, C., Navarro, F., Alcain, FJ, Villalba, JM: Експресия на NAD(P)H: хинон оксидоредуктаза 1 в HeLa клетки роля на водороден пероксид и фаза на растеж. - J. biol. Chem. 276: 44379-44384, 2001.
Bustin, SA, Vandesompele, J., Pfaffl, MW: Стандартизация на qPCR и RT-qPCR. - Женет. инж. Биотехнология. Новини 29: 40-43, 2009 г.
Cheng, XY, Wei, T., Guo, B., N, I W., Liu, CZ:Цистанчесуспензионни култури от клетки deserticola:фенилетаноидгликозидибиосинтеза и антиоксидантна активност. - Биохимични процеси. 40: 3119-3124, 2005.
Cheng, XY, Zhou, HY, Cui, X., Ni, W., Liu, CZ Подобряване нафенилетаноидгликозидибиосинтеза вЦистанчесуспензионни култури от клетки deserticola чрез хитозанов елиситор. - J. Biotechnol. 121: 253-260, 2006.
Furlan, A., Llanes, A., Luna, V., Castro, S.: Абсцизовата киселина медиира производството на водороден пероксид във фъстъци, предизвикано от воден стрес. - Biol. Завод. 57: 555-558, 2013 г.
Gupta, SK, Ra,i AK, Kanwar, SS, Chand, D., Singh, NK, Sharma, TR: Единственият функционален ген за устойчивост на взривове Pi54 активира сложен защитен механизъм в ориза. - J. Exp. Бот. 63: 757-772, 2012 г.
Hu, GS, Jia, JM, Hur, YJ, Chung, YS, Lee, JH, Yun, DJ, Chung, WS, Yi, GH, Kim, TH, Kim, DH: Молекулярна характеристика на фенилаланин амонячно-лиазен ген отЦистанчеdeserticola. - Мол. Biol. Справка 38: 3741-3750, 2011 г.
Кар, РК: Реакции на растенията при воден стрес: роля на реактивните кислородни видове. - Сигнално поведение на растението 6: 1741-1745, 2011 г.
Karyotou, K., Donaldson, RP: Аскорбат пероксидаза, чистач на водороден пероксид в глиоксизомни мембрани. - Дъга h. Biochem. Biophys. 434: 248-257, 2005.
Кобаяши, Х., Карасава, Х., Миясе, Т., Фукушима, С.: Изследвания върху съставките нацистанчее билка. 4. Изолиране и структура на 2 нови фенилпропаноидни гликозида, цистанозид-C и цистанозид-D. - Chem. Pharm. Бик. 32: 3880-3885, 1984.
Liu, CZ, Cheng, XY: Подобряване нафенилетаноидгликозидибиосинтеза в клетъчни култури наЦистанчеdeserticola чрез осмотичен стрес. - Plant Cell Rep. 27: 357-362, 2008 г.
Liu, JY, Guo, ZG, Zeng, ZL: Подобрено натрупване нафенилетаноидгликозидичрез захранване на прекурсор към суспензионна култура наЦистанчесалса. - Биохимия. инж. J. 33: 88-93, 2007.
Liu, XQ, Bai, XQ, Qian, Q., Wang, XJ, Chen, MS, Chu, CC: OsWRKY03, оризов транскрипционен активатор, който функционира в защитния сигнален път преди OsNPR1. - Cell Res. 15: 593-603, 2005.
Murashige, T., Skoog, F.: Преработена среда за бърз растеж и биотестове с тъканни култури от тютюн. - Физиол. Завод. 15: 473-497, 1962.
Nan, ZD, Zeng, KW, Shi, SP, Zhao, MB, Jiang, Y., Tu, PF:Фенилетаноидгликозидис противовъзпалителни действия от стъблата наЦистанчеdeserticola, култивиран в пустинята Тарим. - Fitoterapia 89: 167-174, 2013.
Nanda, AK, Andrio, E., Marino, D., Pauly, N., Dunand, C.: Реактивни кислородни видове по време на ранните взаимодействия растение-микроорганизъм. - J. Integr. Plant Biol. 52: 195-204, 2010 г.
Ouyang, J., Wang, XD, Zhao, B., Wang, YC: Подобрено производство нафенилетаноид гликозидичрез захранване на прекурсор към клетъчната култура наЦистанчеdeserticola. - Биохимични процеси. 40: 3480-3484, 2005a.
Ouyang, J., Wang, XD, Zhao, B., Wang, YC: Подобрено производство нафенилетаноидгликозидиотЦистанчеклетки deserticola, култивирани във въздушен биореактор с вътрешен контур със ситово устройство. - Ензимен микробиол. техн. 36: 982-988, 2005b.
Salcedo-Morales, G., Jimenez-Aparicio, AR, Cruz-Sosa, F., Trejo-Tapia, G.: Анатомична и хистохимична характеристика на in vitro haustorium от корени на Castilleja tenuiflora. - Biol. Завод. 58: 164-168, 2014 г.
Sathiyaraj, G., Srinivasan, S., Kim, YJ, Lee, OR, Parvin, S., Balusamy, SR, Khorolragchaa, A., Yang, DC: Аклиматизацията на водороден пероксид повишава толерантността към сол чрез активиране на протеини, свързани със защитата в Panax ginseng CA Meyer. - Мол. Biol. Справка 41: 3761-3771, 2014 г.
Schmidt, R., Mieulet, D., Hubberten, HM, Obata, T., Hoefgen, R., Fernie, AR, Fisahn, J., Segundo, BS, Guiderdoni, E., Schippers, JHM, Mueller-Roeber, B.: SALTRESPONSIVE ERF1 регулира зависимо от реактивните кислородни видове сигнализиране по време на първоначалния отговор на солевия стрес
в ориз. - Растителна клетка 25: 2115-2131, 2013 г.
Wang, T., Zhang, XY, Xie, WY:Цистанчеdeserticola YC Ma, „Пустинен женшен“: преглед. - амер. J. брадичка. Med. 40: 1123-1141, 2012 г.
Wi, SG, Chung, BY, Kim, JH, Lee, KS, Kim, JS Модел на отлагане на водороден пероксид в обвивките на листата на ориз при солен стрес. - Biol. Завод. 50: 469-472, 2006.
Zhou, XF, Jin, YH, Yoo, CY, Lin, XL, Kim, WY, Yun, DJ, Bressan, RA, Hasegawa, PM, Jin, JB: CYCLIN H1 регулира реакциите на стрес от суша и индуцираното от синя светлина отваряне на устицата чрез инхибиране на натрупването на реактивни кислородни видове в Arabidopsis. - Физиология на растенията. 162: 1030-1041, 2013 г.


