Оксидативният стрес, дисфункционалният енергиен метаболизъм и дестабилизиращите невротрансмитери променят мозъчния метаболитен профил в плъх модел на симулирано гмуркане с хелиоксово насищане до 4.0 MPa Ⅱ
Jul 06, 2023
Процедура за екстракция на тъкан
Процедурата за екстракция на полярни метаболити от тъканни проби е незначителна модификация, както се съобщава [18]. Предварително претеглени замразени тъканни проби се размразяват върху лед и след това се подлагат на механична хомогенизация в ледено студена метанол-хлороформ-вода разтворител клас HPLC (400 μL, 400 μL и съответно 285 μL на 100 mg мозъчна тъкан), като се използва тъканен хомогенизатор (Precellys 24, Bertin Technologies, Villeurbanne, Франция). Получените хомогенати се задържат върху лед за период от 30 минути и след това се центрофугират при 12,000 xg за период от 10 минути при 4˚C. След това супернатантата от всяка проба беше отстранена и лиофилизирана, за да се получи прах, съдържащ полярни метаболити в сушилня за замразяване (FD-1A-80, BIOCOOL, Китай). Всяка прахообразна проба впоследствие се възстановява с 550 μL PBS буфер с 0,1 процента TSP и след това всички проби се смесват старателно ротационно и се центрофугират при 12,000 xg за период от 20 минути при 4˚C. След това аликвотна част от 500 μL супернатант се прехвърля в NMR епруветка с диаметър 5.0 mm (Norrel, UK). Принципът на екстракция на протеин в пробата от кората беше както е описано по-рано без модификации. Точното количество проби от кората се излива в буфер за хомогенизиране (HEPES 25 mmol/L, pH 7,4, MgC12 5 mmol/L, DTT 2 mmol/L, EDTA 1,3 mmol/L, EGTA 1 mmol/L, 0,1 процента Triton X-100, апротинин, пепстатин А и леупептин 10 ug/ml всеки) и се хомогенизират ръчно в ледена баня. Сместа се центрофугира при 1,000 xg за период от 10 минути при 4˚C и супернатантата се използва за количествено определени протеинови концентрации с помощта на теста на Брадфорд.
Щракнете тук, за да се запознаете с антиокислителната функция на Cistanche
Биохимичен анализ
Чувствителен, конкурентен ензимно-свързан имуносорбентен анализ (ELISA) беше приложен с комплекти за анализ за количествено определяне на метаболитните ензими Na-KATPase и AChE и невротрансмитерите DA, E, NE, 5HT и GABA. ELISA също определя нивата на SOD, MDA и GPx в кортикална тъкан с комплекти за анализ съгласно инструкциите на производителя.
ЯМР измерване
Ефективното количествено определяне на тъканните метаболити беше постигнато с помощта на аналитична платформа, базирана на течен NMR спектрометър с висока разделителна способност Bruker Avance-III, оборудван с високочувствителна криогенна сонда, работеща на честота 600. 17 MHz за 1 H наблюдение при 298 K. Потисната от водата едномерна 1 H ZGPR (TOPSPIN версия 3.0, Bruker Biospin) импулсна последователност (RD-90˚-ACQ) беше приложена към получаване на NMR данни за всяка проба. Четири фиктивни сканирания и 128 преходни процеса бяха записани във времеви домейн от 32 K точки от данни, използвайки спектрална ширина от 20 ppm със забавяне на релаксация от 10,0 s и време за придобиване от 2,73 s. Функция за експоненциално разширяване на линията от 0,3 Hz и нулево запълване до 64 K точки от данни бяха приложени към всички затихвания на свободната индукция (FID) преди трансформацията на Фурие. Допълнителни двуизмерни NMR техники с корелационна спектроскопия с градиент на импулсно поле (gCOSY) и 2D хомонуклеарна тотална корелационна спектроскопия (TOCSY) бяха използвани, като се използваха стандартни импулсни програми върху избрани проби, за да се потвърди заданието за химично отместване. Автоматизирано устройство за смяна на проби за непрекъснато доставяне на проби беше използвано при получаването на всички спектри.
Идентификация и потвърждение на метаболит
ЯМР сигналите, базирани на местоположението на отделните резонанси върху спектрите, бяха идентифицирани в софтуерния пакет Chenomx NMR Suite v. 8.4 (версия за оценка). Потвържденията на някои метаболитни присвоявания бяха извършени, като се има предвид химичните отмествания, константите на свързване и моделите на множественост на метаболитите като информация за скаларни свързвания, извлечени от 1 H–1 H COSY, 1 H–1 H TOCSY, публични NMR бази данни като COLMAR и Human Metabolome База данни (HMDB) и литературата [18, 19].
Многомерен статистически анализ
Протоколът за предварителна обработка, използван за предварителна обработка на всеки 1D1H NMR спектър, беше същият като този, описан в предишната ни работа [20]. 1Н NMR спектрите бяха фазирани и коригирани спрямо базовата линия с помощта на MestReNova (Mestrelab Research, SL, Испания) и спектралната област на всеки метаболит беше интегрирана в една кофа. Резонансите на сигнала на органичния разтворител и остатъчната H2O/HOD сигнална област бяха отстранени във всички 1D1H NMR спектри. Във всички спектри бяха приложени 0.{{30}}03 Hz кофична процедура и нормализация към сбора на спектралния интензитет, умножен по 10 000. Само най-големите стойности на кофата в един пик бяха избрани за анализа на следващата стъпка, за да се избегне погрешно тълкуване на дискриминантните метаболити поради припокриващи се сигнали. Впоследствие, интегрални кофи от 47 метаболита бяха извлечени и подложени на едновариантен и многовариантен анализ на данните. Анализ на недискриминация чрез анализ на главните компоненти (PCA) и анализ на дискриминация чрез частичен дискриминантен анализ на най-малките квадрати (PLS-DA) и дискриминантен анализ на ортогонални проекции към латентни структури (OPLS-DA) беше извършен с помощта на софтуерния пакет SIMCA-P plus 14.0 (Umetrics , Umeå, Швеция), мащабирани до данни за дисперсия на единица. PCA и PLS-DA резултатните графики бяха илюстрирани с първия и втория главни компоненти (t[1], t[2]), докато OPLS-DA резултатният график използва t[1] и ортогоналния компонент (to[1) ]). Параметрите Q2 (cum), R2Y (cum) и R2X (cum) бяха изчислени, за да се тества устойчивостта на дискриминационните модели срещу пренастройване [21]. Както беше описано по-горе, стойност за оценка на качеството от Q2 � 0,4 се счита за надежден модел. Стратегията за седемкратно кръстосано валидиране и тестът за пермутация 200 пъти с първия компонент бяха приложени, за да се предпази от пренастройване на модела и допълнително да се потвърди надеждността и достоверността на моделите. Ако регресионната линия на Q2 имаше отрицателна пресечна точка и стойностите на Q2, поставени в най-лявата точка, бяха по-големи от всички стойности на Q2 на десните точки в пермутирания тест, установеният модел OPLS-DA беше стабилен [22]. Стратегията за кръстосано валидиране на 10-сгъване по подразбиране беше приложена за предпазване от пренастройване на модела. Като цяло, статистика за оценка на качеството (Q2) � 0,4 се счита за надежден модел, както беше описано по-горе. Коефициентите на корелация (r) и VIP стойностите, извлечени от моделите OPLS-DA, бяха използвани за идентифициране на метаболити, които допринесоха значително за разделянето между двете групи. Освен това, кратните промени на метаболитите между групите бяха изчислени с помощта на функция. IA/IB, където IA и IB представляват средните стойности за метаболитния интеграл в групите A и B, съответно. Топлинната карта и кутийните диаграми бяха начертани, за да се улесни разбирането на метаболитните вариации между групите.

Едномерна статистика на метаболитни интеграли
Средната стойност на кофата на метаболитите във всяка група се изразява като средно ± стандартно отклонение (SD). Унивариантният анализ също беше извършен с помощта на ANOVA (анализ на дисперсията). Статистически значимите разлики между групите бяха оценени чрез несдвоен t-тест на две опашки след преобразуване на логаритмични данни в софтуер GraphPad Prism V 8.4.3 (Graph Pad Software Inc., Сан Диего, Калифорния, САЩ). Статистически значимите разлики се определят от стойностите на p (< 0.05). According to the three criteria, including an absolute value of r greater than 0.50, a value of VIP greater than 1.0, and a p-value less than 0.05, the bucket variables with one of three features will be selected as discriminatory variables. Because more than one bucket value was listed from the same metabolite, two or more discriminative variables arising from the same metabolite will be present in the discriminatory panel. Selection will be carried out based on VIP rankings, and only the variables from the same metabolites with the highest VIP values were therefore selected as discriminatory metabolite level features, which will be included in the next-step analysis.
Системен статистически метаболитен корелационен анализ и йерархичен клъстър анализ
Изчислението на коефициента на корелация на Pearson и йерархичният клъстерен анализ бяха извършени въз основа на относителните интеграли на метаболитите в R Studio (Версия 1.4.1717) с малки скриптове. За всяка групова двойка корелационната матрица беше илюстрирана в пикселна карта, както е описано в литературата [21]. Накратко, за всяка променлива в една група корелациите с p стойности по-малки от 0.05 се считат за значими статистически корелации и се запазват, за да се конструира крайната корелационна мрежа, за да се илюстрират латентните връзки на метаболитите в рамките на група и нарушените метаболитни взаимоотношения между групите. По-червените квадрати показват по-значима положителна корелация. По-сините квадрати показват по-значима положителна корелация. Белите квадратчета показват корелацията без значение. Анализът на най-подходящите церебрални метаболитни пътища и мрежи, извиквани като респонденти на HSD, беше извършен с помощта на инструмента MetaboAnalyst 3.0. За извършения анализ на топологията на пътя беше избрана библиотеката на пътя на бозайниците Rattus norvegicus (плъх). Този подход беше използван и за осигуряване на оценки на въздействието на пътя, степента на фалшиво откриване (FDR) и стойностите на p.
Резултати Кортикални биохимични индекси от групите HSD и CON
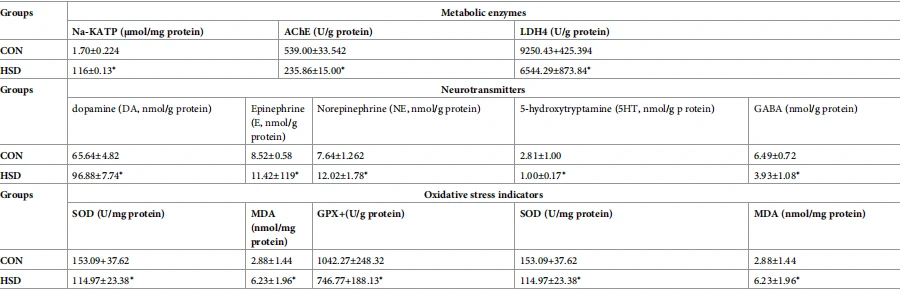
За валидиране на метаболитните промени на HSD върху мозъчните тъкани, биохимичните параметри, включително свързаните с енергийния метаболизъм метаболитни ензимни активности на Na-KATP, AChE и LDH, невротрансмитерите на DA, E, NE, 5HT и GABA, и напротеини, свързани с оксидативния стреснаКОПКА, MDA, и Gpx в тъканите на ипсилатералната кора на HSD и CON плъхове също бяха определени (Таблица 1). В сравнение с контролната група нивата на DA, E, NE и MDA бяха значително повишени, докато съдържанието на Na-KATP, AChE, LDH, 5HT, GABA, SOD и Gpx беше намалено в HSD модела. Границата на откриване на комплекти за анализ, използвани в настоящата работа, е посочена в таблицата S3 във файла с допълнителни материали.
Таблица 1. Количественото определяне на биохимичните параметри беше измерено в тъкан на кората на CON и HSD животни чрез ELISA с комплектите за анализ. (средно ± SD). показва статистическа значимост.

Метаболити, идентифицирани в 1Н NMR спектри на проби от мозъчна тъкан
Фигура 3 показва три представителни 'Н NMR спектъра от кората на главния мозък (Фигура ЗА), хипокампуса (Фигура 3В) и стриатума (Фигура 3С) на HSD плъх. Широка гама от видни метаболити бяха идентифицирани според 1H NMR данните от мозъчни тъканни проби и те са органични киселинни аниони (лактат (Lac), малонат (Maln), сукцинат (Suc), малат (Mal), фумарат (FMA) ), 2-хидроксибутират (2-HB), ацетат (Ace), формиат (For), таурин (Tau), аскорбат (Asc), 2-хидроксибутират (2HIB)), аминокиселини (левцин (Leu), изолевцин (Ile), валин (Val), аланин (Ala), глицин (Gly), тирозин (Tyr), фенилаланин (Phe), аспартат (Asp), глутамин (Gln), глутамат (Glu) , треонин (Thr), серин (Ser), лизин (Lys), аспарагин (Asn)), невротрансмитери (-аминобутират (GABA)), свързани с енергията метаболити (креатин (Cre), аденозин трифосфат (ATP), аденозин монофосфат ( AMP)), метаболити, свързани с фосфолипид (Офосфоетаноламин (PEA), О-фосфохолин (Pcho), sn-глицеро-3-фосфохолин (GPC)) и други (мио-инозитол (MI), никотинамид аденин динуклеотид (NAD плюс) ), никотинова киселина (Nic), N-ацетиласпартат (NAA), никотинамид-аденин-динуклеотид фосфат (NADP плюс), UDP-N-галактоза (UDPGa), уридин (Uri), урацил (Ura), цистидин (Cyt) , уридин 5'-монофосфат (UMP), инозин 5'-монофосфат (IMP), инозин (Ino), холин (Cho), карнитин (Car), глутатион (GSH). Таблица S1 показва подробна информация за присвояването на метаболитите.
Промени в метаболитния профил, разкрити чрез метаболомен анализ
PCA, проучвателен и безпристрастен подход за анализ на 1H NMR спектрите от всички мозъчни екстракти в различни области на мозъка, беше направен за първи път, за да разкрие основните метаболитни тенденции, предизвикани от хипербарно излагане на 400 msw хелиоксова наситена среда. Графика на разсейване на PC1 срещу PC2, получена от PCA (S1A–S1C Фиг.) на интегрални данни от кофата, разкрива известна дискриминация с известно припокриване между двете класификации. Наблюдавани изследвания на PLS-DA (S1A'–S1C' Фигура) и OPLS-DA (Фигура 4A–4C) модели показват ясна класова дискриминация на метаболитните профили между групите. Фигура 4 показва графиките на резултата на модела OPLS-DA за областта на кората (A), областта на хипокампуса (B) и областта на стриатума (C), показвайки ясна дискриминация между HSD групите и контролите. Високата обяснена вариация и добротата на прогнозата, отразена от стойностите на R2X и Q2 (S1A'–S1C' Фигура, Фигура 4A–4C) и тестови графики за пермутация (Фигура 4'-4C'A) показват, че устойчивост на генерираните контролирани модели. Коефициентът на корелация (r), извлечен от графиките на S-линията, променливата важност в проекцията (VIP) и p-стойността от непараметричните едномерни тестове бяха събрани, за да се оценят значимите метаболити, отговорни за класово-дискриминиращите модели. Следователно, отговаряйки на който и да е от трите критерия (абсолютната стойност на r по-голяма от 0.50, стойността на VIP по-голяма от 1,0, заедно с p стойност по-малка от 0,05), ние избрахме панел от статистически значими метаболити (Таблица 1), отговорен за разделянето между CON и HSD групите. В Таблица 1 стойностите на промяна на сгъването, по-големи от 1, показват повишено ниво в групата HSD, докато стойностите на промяна на сгъването по-малки от 1 показват понижено ниво в групата на HSD. Средните стойности на SD на дискриминативни метаболити са изброени в таблица S2. Използвайки йерархичния клъстерен анализ на метаболитите и метода на средното свързване, генерираната топлинна карта (Фигура 5A–5C) с дендрограми позволява по-добро визуализиране на метаболитни промени в три мозъчни области, причинени от хипербарна експозиция в среда, наситена с хелий и кислород.

Метаболитни нарушения, наблюдавани в различни области на мозъка на HSD плъхове
Горепосоченият многовариантен анализ и едновариантен анализ, използвайки височината на кофата на метаболитите в различните групи, предоставиха страхотна работна тръба за идентифициране на дискриминативни метаболити, разкриващи потенциалните неврологични метаболитни промени, свързани с HSD събития. Повишени AMP, FMA, Nic и Phe и намаление на Ala, Asn, Car, Cho, Cyt, GABA, GSH, Ino, Lac, Pcho, Phe, Tyr, Ura и Uri бяха открити в тъканта на кората на HSD група в сравнение с групата CON (Фигура 5A, Таблица 1). Междувременно, в хипокампуса, Ala, GSH, Lac, Uri, Cyt, GABA, Tyr и Ura също намаляват и AMP се увеличава в HSD групата, както се случи в кората. Освен това, регулираните нагоре Thr и регулираните надолу Gly, ATP, Tau, Imp, Suc, Asc и DMA бяха експресирани в екстракти от хипокампуса на HSD групата спрямо контролите (Фигура 5B, 5D, Таблица 1). В сравнение с групата CONS, съдържанието на Cyt, GABA, Ura, Cho и Thr също намалява, както в кората и хипокампуса. В допълнение, повишени нива на аминокиселини с разклонена верига (BCAA, включително Leu, Ile, Val) и Lys и понижени нива на Gln, NAA, NAD плюс, NADP плюс, Asp, серия от метаболити на ATP, Tau, IMP, и Suc, който също намалява в хипокампуса, и други два метаболита, Ino и Pcho, които също намаляват в кората, се наблюдават в тъканите на стриатума на плъхове от групата HSD (Фигура 5C, 5D, Таблица 1). Такива много метаболити винаги показват замесени молекулярни пътища със сложност и разнообразие. Интегралните стойности на кофата на дискриминантните метаболити бяха количествено определени и статистически значимите кратни промени на техните концентрации между експонираните с хелиокс-насищане-хипербарна експозиция и контролните групи са обобщени в таблица S2 и таблица 2 за трите мозъчни области.
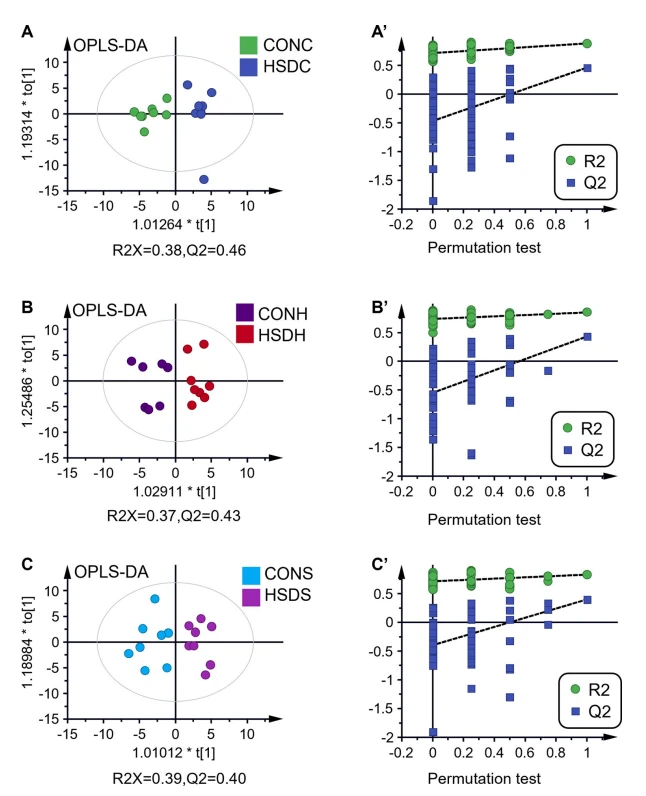
Фигура 4. Ортогонални частични дискриминантни квадрати на най-малките квадрати (OPLS-DA) графики и тестови графики за пермутация, които разграничават ефекта от експозицията на 400 msw хелиокс-насищане върху 1H NMR спектри от контролни групи в кората на главния мозък (CONC, n=8, HSDC, n=8, A и A') (R2X=0.38; Q2=0.46), хипокампус (CONH, n {{12} }, HSDH, n=8, B и B') (R2X=0.37; Q2=0.43) и стриатум (CONS, n=8, HSDS, n=8, C и C') (R2X=0.39; Q2=0.40). Стойностите на параметъра Q2 в диаграмите на OPLS-DA, които са равни или по-големи от 0,40, съчетани със стойностите на Q2 на най-лявата точка в пермутираните модели, са по-големи от всички монтирани Q2 стойности на десните точки (пермутация тест 80 пъти), което показва, че установените OPLS-DA модели са валидни.
Pcho, което също намалява в кората, се наблюдава в тъканите на стриатума на плъхове от групата HSD (Фигура 5C, 5D, Таблица 1). Такива много метаболити винаги показват замесени молекулярни пътища със сложност и разнообразие. Интегралните стойности на кофата на дискриминантните метаболити бяха количествено определени и статистически значимите кратни промени на техните концентрации между експонираните с хелиокс-насищане-хипербарна експозиция и контролните групи са обобщени в таблица S2 и таблица 2 за трите мозъчни области.
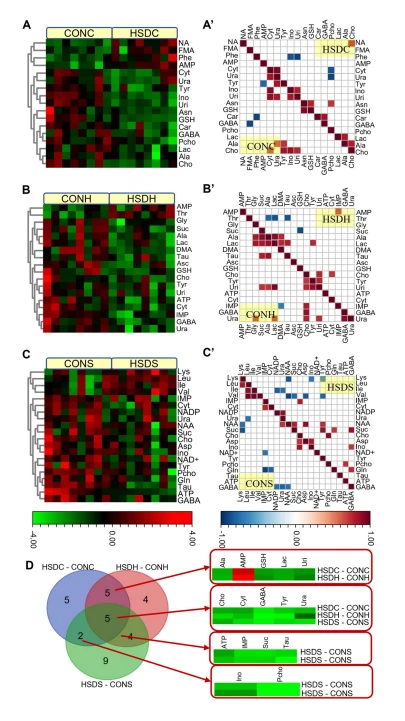
Фигура 5. Графики на топлинна карта и статистическа корелация, получени от стойностите на кофата на дискриминиращите метаболити от кората (A, A', HSDC пробите се намират в горния панел, а CONC се намират в долния панел), хипокампуса (B, B', HSDH група лежи в горния панел и CONH лежи в долния панел) и стриатум (C, C', HSDS пробите лежат в горния панел и CONS лежи в долния панел) тъкани на HSD и CON плъхове. Метаболитите на топлинната карта са организирани чрез йерархично групиране въз основа на общото сходство в моделите на нивата. Диаграма на Venn (D), илюстрираща метаболитно припокриване сред сравненията на HSDC-CONC, HSDH-CONH и HSDS-CONS.
Метаболитен корелационен анализ
Връзката между или между метаболитите беше толкова сложна на Фигура 5A'-5C'. За енергийните метаболити, положителните корелации за Lac срещу Ala в HSDC, AMP срещу IMP в HSDH, ATP срещу Pcho в HSDS, Suc срещу GABA/Gln/Tyr/NAA в HSDS и отрицателните корелации за Lac срещу Thr и GSH срещу Suc в HSDH, Suc срещу Val в HSDS присъстваха в корелационните диаграми на метаболита. За невротрансмитерите положителните корелации за GABA срещу Car в HSDC, GABA срещу Cho в CONH и GABA срещу Suc/Ino/Gln в HSDS присъстваха в корелационните графики на метаболита. Отрицателните корелации за GABA срещу FMA в CONC и GABA срещу NAA/Ura/NADP плюс в CONS присъстваха в корелационните диаграми на метаболита. За метаболитите, свързани соксидативен стрес, наположителни корелацииза GSH срещу Asn в HSDC и CONC, Tau срещу Lac в HSDH, Tau срещу Suc/Ala в CONH, отрицателните корелации за GSH срещу Suc в HSDH, Tau срещу Thr в HSDH присъстваха в метаболитната корелация парцели.

Анализ на метаболомичния път
Количественият анализ на пътя, състоящ се от анализ на обогатяването на пътя и въздействието на пътя от топологията на пътя, разкри високо статистически значими HSD-индуцирани модулации на серия от метаболитни пътища. Резултатите за въздействие на пътя, заедно със степента на фалшиво откриване (FDR) и стойностите на p, са описани на Фигура 6. Пътищата се считат за значително обогатени, ако стойностите на p са по-ниски от 0.05; профилираните метаболити (попадения) спрямо общите метаболити на пътя (статус на съвпадение) са по-високи от 1; и резултатите за въздействие (показващи въздействието на значително засегнатите метаболити в пътя въз основа на мярката на топологията на мрежата за относителна централност на междинността) бяха по-високи от 0. Пътищата в кората (Фигура 6A) с най-голяма стойност на метаболитно въздействие бяхафенилаланин, тирозин, ибиосинтеза на триптофан>метаболизъм на фенилаланин> метаболизъм на пиримидин > метаболизъм на аланин, аспартат и глутамат. Пътищата в хипокампуса (Фигура 6B) с най-голямо метаболитно въздействие са биосинтезата на фенилаланин, тирозин и триптофан > метаболизъм на глутатион > метаболизъм на глицин, серин и треонин > метаболизъм на пурин > метаболизъм на пиримидин > метаболизъм на аланин, аспартат и глутамат > метаболизъм на бутаноат . Пътищата в стриатума (Фигура 6C) с най-голямо метаболитно въздействие са метаболизъм на аланин, аспартат и глутамат > метаболизъм на никотинат и никотинамид > метаболизъм на пурин.
Питай за още:
Имейл:wallence.suen@wecistanche.com
Whatsapp/телефон: плюс 86 15292862950