

IL-38 предотвратява индуцирането на трениран имунитет чрез инхибиране на MTOR сигнализация
Mar 06, 2023
Резюме:
Обученият имунитет е придобиването на хиперотзивчив фенотип от вродени имунни клетки (като моноцити и макрофаги) след инфекция или ваксинация, де факто неспецифична памет, зависима от епигенетичното и метаболитно препрограмиране на тези клетки. Наскоро показахме, че индукцията на обучен имунитет зависи от IL-1.
Тук показваме, че рекомбинантният IL-38, противовъзпалителен цитокин от семейството на IL-1-, е в състояние да индуцира дългосрочни инхибиторни промени и да намали индукцията на трениран имунитет от -глюкан in vivo в C57BL/6 мишки и ex vivo в техните клетки от костен мозък. IL-38 блокира mTOR сигнализирането и предотвратява епигенетичните и метаболитни промени, предизвикани от -глюкан. При здрави индивиди свързаният с IL1F10- единичен нуклеотиден полиморфизъм rs58965312 корелира с по-високи плазмени концентрации на IL-38 и намалена индукция на трениран имунитет от -глюкан ex vivo. Тези резултати показват, че IL-38 индуцира дългосрочни противовъзпалителни промени и също така инхибира индукцията на трениран имунитет. Следователно рекомбинантният IL-38 може потенциално да се използва като терапевтична интервенция за заболявания, характеризиращи се с изострен трениран имунитет.
КЛЮЧОВИ ДУМИ
етанол, възпаление, изгаряне, малки РНК
Щракнете, за да получите pdf продукт от cistanche tubulosa
1. ВЪВЕДЕНИЕ
Все по-голям брой проучвания показват, че моноцитите и макрофагите могат да придобият дългосрочни функционални адаптивни промени, де факто вродена памет, която е наречена „обучен имунитет“.1–3 Функционалното ремоделиране на миелоидните клетки се медиира от епигенетично и метаболитно пренавиване , включително на техните прогенитори в костния мозък.4–7 Обученият имунитет може да бъде индуциран от ваксини като bacillus CalmetteGuerin (BCG), която предпазва от Mycobacterium tuberculosis, или имуномодулатори като -glucan, често срещан компонент на гъбичната клетъчна стена.8,9 Пренавиването на епигенома на миелоидните клетки често води до дълготрайни модификации, като повишена защита на гостоприемника срещу несвързани инфекции.1,10 Например, BCG ваксинацията на новородени в Западна Африка намалява смъртността от инфекции,11 и BCG ваксинацията при здрави възрастни намалява последващото жълто ваксина срещу треска, виремия и паразитемия в модел на експериментална човешка малария, което корелира със степента на BCG-зависими епигенетични промени в циркулиращите моноцити. се достигне състояние, което води до намалена смъртност от, например, гъбичен сепсис и Staphylococcus aureus сепсис.7,9
Семейството IL-1 се състои от 11 члена13,14; сред които IL-37 и IL-38 имат широки противовъзпалителни свойства.15,16 По-рано докладвахме, че IL-1 е централен в индуцирането на обучен имунитет12 и че IL{{ 11}} инхибира индуцирането на обучен имунитет.17 Освен това беше установено, че IL-1 е цитокинът, който е най-значително повишен в костния мозък на мишки, третирани с -глюкан, и е причина за индуцирането на обучен имунитет.7 В в vitro модели на обучен имунитет, първичните човешки моноцити отговарят на IL-1 с епигенетични промени, които увеличават производството на възпалителни цитокини като TNF и IL-6.12 Освен това, алелът А на единичния нуклеотиден полиморфизъм ( SNP) rs16944 в промоторната област на гена IL1B се свързва с повишена индукция на трениран имунитет в човешки моноцити.12
По-рано сме докладвали, че IL-38 може да инхибира IL-1, IL-6 и KC в модел на подагрозен артрит.18 Тъй като IL-38 може да блокира IL{{5 }}, ние предполагаме, че IL-38 има инхибираща роля в индуцирането на обучен имунитет. В този доклад имахме за цел да дефинираме ролята на IL-38 в индуцирания от -глюкан обучен имунитет. Ние показваме, че IL-38 инхибира индукцията на обучен имунитет в миши модели чрез прекъсване на mTOR сигналната каскада, която е от съществено значение за индуцирането на обучен имунитет.5 При здрави хора ние показваме, че SNP rs58965312 засяга IL{{ 12}} плазмени нива и обучен имунитет in vitro.
2. МАТЕРИАЛИ И МЕТОДИ
2.1 Мишки
Седем до деветседмични мъжки C57Bl/6 мишки бяха получени от Jackson Laboratories (Bar Harbor, ME, USA). Мишките се хранят със стерилизирана лабораторна храна и вода ad libitum. Експериментите бяха одобрени от институционалните комитети за грижа и използване на животните на Университета на Колорадо в Денвър (Аврора, Колорадо, САЩ).
2.2 Модел на обучен имунитет
Мишките получиха 1 ug биоактивен18,19 човешки рекомбинантен IL-38 (3-152) (Biotechne, Minneapolis, MN, USA) интраперитонеално в стерилен физиологичен разтвор в обем от 200 ul или само физиологичен разтвор за три последователни дни. На първия ден, 1 час след инжектирането на IL-38, мишките получиха ip. Общо 1 mg -глюкан (1,3-(D)-глюкан) беше любезно предоставен от професор Дейвид Уилямс ( Колеж по медицина, Джонсън Сити, Тенеси, САЩ) или 200 ul физиологичен разтвор като контролен разтвор. На петия ден мишките бяха директно умъртвени или първо заразени с 5 mg/kg LPS (Escherichia coli[055:B5] Sigma-Aldrich, St. Louis, MO, USA) ip в 200 ul стерилен физиологичен разтвор 4 часа преди умъртвяването. Телесната температура на мишката се измерва с MT4 термометър (RayTek MiniTemp, Wilmington, NC, USA). След анестезиране с изофлуран, кръвта от орбиталния плексус се събира в EDTA и мишките се умъртвяват чрез цервикална дислокация. Кръвта се центрофугира при 1000 × g за 10 минути, за да се подготви плазма за измерване на цитокини.
2.3 In vitro производство на цитокини
Производството на цитокини се оценява ex vivo в цяла кръв, клетки от костен мозък и спленоцити.
Цялата кръв се разрежда 1:4 пъти в RPMI 1640. Общо 200 ul обем се поставят в 96-плочки с кръгло дъно и се инкубират в продължение на 24 часа без стимул или 100 ng/ml LPS (±10 μM нигерицин [Invivogen, Сан Диего, Калифорния, САЩ] през последния час) при 37◦C в 5 процента CO2. След 24 часа се събират 180 ul от супернатанта и клетъчната пелета се съхранява в 0,5 процента Triton X-100 (Sigma, St. Louis, MO, USA). Бедреният костен мозък се суспендира в културална среда RPMI, преброява се на брояч на клетки HemaTrue (Heska, Loveland, CO, USA) и се коригира до 1 × 10⁶/ml. Общо 200 ul от клетъчната суспензия се поставят в 96-плочки с кръгло дъно и се инкубират в продължение на 24 часа в RPMI (без добавяне на растежни фактори) при същите условия, както е описано по-рано. Далаците бяха асептично отстранени, хомогенизирани през 100 μm клетъчни филтри (Thermo Fisher Scientific, Waltham, MA, USA) и събрани в RPMI. Клетките се преброяват и се коригират до 5 × 10⁶/ml. Общо 200 ul от клетъчната суспензия се поставят в 96-плочки с кръгло дъно и се инкубират за 24 часа или 3 дни в RPMI, съдържащ 10 процента FBS, при същите условия, както е описано по-рано.
2.4 Измерване на цитокини чрез ELISA и измерване на лактат
Супернатантите и плазмата се съхраняват при -20 °C до по-нататъшен анализ. ELISA се извършва съгласно инструкциите на производителя (BioTechne), с изключение на IL-38 ELISA върху човешка плазма, както е описано другаде.20
Миша плазма и костен мозък бяха получени, както е описано, и нивата на лактат бяха определени чрез наличен в търговската мрежа комплект за лактатен флуорометричен анализ (Biovision, Milpitas, СА, САЩ).
2.5 Уестърн блот
Костен мозък от наивни мишки се събира, както е описано по-рано. Общо 1 × 10⁶ клетки бяха култивирани в 12-плака с плоско дъно и инкубирани за 3 d в RPMI, съдържащ 10 процента серум. Супернатантата с незалепнали клетки се отстранява. След 4 часа инкубация (което беше оптимално за mTOR фосфорилиране) със или без 5 ug/ml -глюкан ± 100 ng/ml IL-38 в RPMI, клетките бяха лизирани в RIPA буфер, съдържащ протеазен инхибитор (Roche, Basel, Швейцария ). Общото съдържание на протеин се определя чрез BCA анализ (Thermo Fisher Scientific) и равни количества протеини се подлагат на SDS-PAGE върху предварително отлети 4-15 процента гелове (Biorad, Hercules, CA, USA).
Отделените протеини бяха прехвърлени в нитроцелулозна мембрана (Biorad), която беше блокирана в 5% BSA (Sigma) и инкубирана за една нощ при 4°C със заешки поликлонални антитела срещу (фосфо) mTOR, Akt, 4EBP1 и S6K (клетъчно сигнализиране, Danvers, MA, USA) и -актин (Sigma), които бяха визуализирани с помощта на поликлонално вторично антитяло (Dako, Leuven, Белгия) и SuperSignal West Femto Substrate (Thermo Fisher Scientific) за фосфорилираните протеини или ECL субстрат за другите протеини (Биорад).
2.6 mRNA екстракция и RT-PCR
иРНК от костен мозък на мишка се изолира с екстракция с Trizol (Life Technologies, Карлсбад, Калифорния, САЩ) с хлороформ (Sigma), последвано от утаяване с изопропанол (Sigma) и две промивания със 70 процента етанол (Sigma). cDNA се синтезира с помощта на iScript обратна транскриптаза (Invitrogen, Карлсбад, Калифорния, САЩ). Относителната експресия беше определена с помощта на метода SYBR Green (Invitrogen) на CFX96 Bio-Rad qPCR машина (Biorad) и стойностите бяха изразени като многократни увеличения на нивата на mRNA, по отношение на контролни мишки с носител, с B2M като домакински ген. Праймерите са изброени в таблица S1 с поддържаща информация.
2.7 Имунопреципитация на хроматин
Костният мозък се изолира, както е описано по-рано. Клетките се фиксират в 1% формалдехид без метанол и се съхраняват при 4 ° С. След това клетките се обработват с ултразвук и се извършва имунопреципитация с помощта на антитела срещу H3K4me3 (Diagenode, Seraing, Белгия), както е описано другаде.6 ДНК се изолира с комплект за пречистване MinElute PCR (Qiagen, Germantown, MD, USA) и се обработва допълнително за qPCR анализ с помощта на зеления метод SYBR на машина Step-one PLUS qPCR (Applied Biosciences, Foster City, CA, USA). Пробите бяха анализирани чрез сравнителен Ct метод съгласно инструкциите на производителя. Епигенетичните праймери са изброени в таблица S1 с поддържаща информация.
2.8 PBMC експерименти
Изследването е проведено в кохорта от ±200 здрави индивиди от западноевропейски произход от Проекта за човешка функционална геномика (200FG кохорти, вижте www.humanfunctionalgenomics.org). PBMCs бяха изолирани от съгласие здрави донори, както е описано по-горе.21 Подготовката на плазма за IL-38 ELISA и in vitro стимулации на първични моноцитни стимулации в тази кохорта са описани другаде.22 Моноцитите бяха обучени с -глюкан в продължение на 24 часа, промиват се с топъл PBS и се оставят в RPMI за 6 d. 23 След това клетките се стимулират с 10 ng/ml LPS. След 24 часа супернатантите бяха събрани и съхранени при -20°C, докато IL-6 и TNF бяха измерени чрез ELISA. Плазмените нива на IL-38 се определят чрез ELISA. Състоянието на IL-38 SNP rs58965312 беше оценено, както е описано в методите на Li et al.22 от наличния в търговската мрежа SNP чип, Illumina HumanOmniExpressExome-8 v1.0.
2.9 Статистически анализ
Разликите между различните условия бяха анализирани със съвпадащи двойки Wilcoxon със знаков рангов тест или U-тест на Mann-Whitney, според случая. Данните са представени като средна стойност ± SEM, освен ако не е посочено друго. Данните бяха анализирани с помощта на GraphPad Prism 8.0 (GraphPad Software, La Jolla, CA, USA). P-стойност под 0.05 се счита за значима.

3 РЕЗУЛТАТА
3.1 IL-38 инхибира LPS-индуцираното възпаление
Тези проучвания за предполагаемата роля на IL-38 върху тренирания имунитет започнаха с оценка на ефекта на рекомбинантния човешки IL-38 върху системното възпаление, дължащо се на ендотоксемия. Мишките получават или носител, или 1 ug IL-38 ip на дни 4, 3 и 2 (Фигура 1А). След 4 дни LPS (5 mg/kg) се прилага интраперитонеално на всички мишки и 4 часа по-късно мишките се умъртвяват. Както е показано на фигура 1B, мишките, получаващи IL-38, показват по-малка хипотермия в сравнение с мишките, третирани с носител, което показва намалено възпаление.24 Плазмените концентрации на IL-1, TNF и IL-6 са значително намалени при мишки, третирани с рекомбинантен IL-38 в сравнение с мишки, третирани с носител (фиг. 1C), докато концентрацията на IL-1 в лизатите на цяла кръв не се повлиява от IL-38.
Обратно, не са наблюдавани големи IL-38-зависими промени в броя на клетките в костния мозък, спленоцитите и цялата кръв, с изключение на леко намаление на лимфоцитите в цяла кръв (данните не са показани). Цялата кръв, костният мозък и спленоцитите бяха допълнително инкубирани in vitro за 24 часа без допълнителен стимул. Наблюдавахме намалено спонтанно освобождаване на TNF (75 процента намаление) и IL-6 (25 процента намаление) от цели кръвни култури на мишки, третирани с IL-38 (Фигура 1D отгоре). В култивирания костен мозък също се наблюдава намалено спонтанно освобождаване на TNF (55 процента намаление) (фиг. 1D в средата). Спленоцитите не показват разлики в производството на IL-6 или TNF (фиг. 1D отдолу).

3.2 IL-38 инхибира -глюкан-индуцирания трениран имунитет
След това оценихме дали IL-38 също е в състояние да инхибира индуцирането на трениран имунитет от -глюкан. -глюкан-индуциран обучен имунитет води до усилено производство на цитокини към вторично и несвързано предизвикателство.7,9 Както е показано на Фигура 2А, ние прилагаме рекомбинантен IL-38 (1 ug) или физиологичен разтвор на мишки 1 час преди ip -глюкан (1 mg) на ден -4. В дните -3 и -2 мишките получават 1 ug IL-38 на ден. След 2 дни почивка, всички мишки получават 5 mg LPS. Четири часа след прилагане на LPS, температурата на коремната стена на мишки, третирани с -глюкан, беше намалена с 2 °C в сравнение с мишки, третирани с носител и нормализирана чрез третиране с IL-38 (фиг. 2B). При мишки, третирани с -глюкан и след това предизвикани с LPS, подобно обръщане на ефектите на -глюкан от IL-38 се наблюдава в плазмените TNF, IL-6 и IL-1 (фиг. 2C). Както се очакваше, в ех vivo култивирана цяла кръв (без допълнителна ех vivo стимулация) от -глюкан-обучени мишки беше установено увеличение на производството на TNF и IL-6, което беше отменено чрез добавянето на IL-38 ( Фиг. 2D). Този цитокинов профил се отразява в спленоцитни култури и - макар и не статистически значимо - в костния мозък (фиг. 2D).
3.3 IL-38 предотвратява епигенетичните хистонови промени, индуцирани от -глюкан
Тъй като повишената индукция на възпалителни цитокини от -глюкан е резултат от епигенетични промени на ниво хистони, 4,9 ние след това оценихме влиянието на IL -38 върху епигенетичните модификации при промотори на установени обучени гени, свързани с имунитета. Мишките бяха третирани с -glucan ± IL-38 и умъртвени след 5 дни без провокация с LPS (фиг. 3A). 2,6 Когато цяла кръв, костен мозък и спленоцити бяха стимулирани ex vivo с LPS със или без инфламазомен активатор нигерицин, се наблюдава увеличение в производството на цитокини при обучени с -глюкан мишки, което беше премахнато от IL-38 (Фиг. 3B).
Когато експресията на гени, свързани с обучен имунитет (Tnfa, Nrlp3, Hk2 и Pfkp), беше определена в костния мозък на LPS-провокирани мишки, беше наблюдавана повишена експресия на всички гени, която беше предотвратена от IL-38 (фиг. 3C). За да се определи дали това е резултат от епигенетични модификации, индуцирани от -глюкан и IL-38, костният мозък на нетретирани с LPS мишки беше обработен за епигенетичен анализ. Беше изолирана белязана ДНК с H3K4me3 (важен хистонов маркер в обучен имунитет4,9) и беше определен процентът на промоторите на обучените гени, свързани с имунитета, които бяха положителни за този хистонов белег.2 Както беше показано по-рано, увеличение на промоторите, положителни за H3K4me3 се наблюдава при обучени с глюкан мишки и това се обръща, когато мишките също получават IL38 (фиг. 3D).

3.4 IL-38 възпрепятства зависимото от глюкан Akt/mTOR/S6K сигнализиране
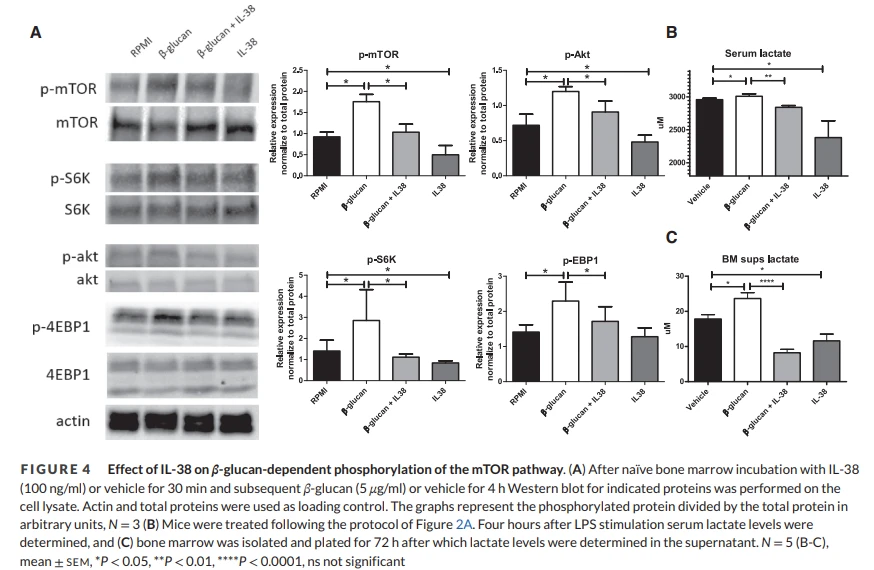
По-рано показахме, че тренираният имунитет в моноцитите зависи от активирането на пътя на mTOR.5 Тъй като IL-38 инхибира индукцията на трениран имунитет, ние предположихме, че се извършва инхибиране на пътя на mTOR, както беше и механизмът за IL-37 инхибиране на обучен имунитет.17 Както е показано на Фигура 4А, индукцията на обучен имунитет в костен мозък от нелекувани мишки от -глюкан in vitro индуцира фосфорилиране на Akt, mTOR и неговите низходящи кинази S6K и 4EBP1. IL-38 намалява това фосфорилиране, което показва, че IL38 инхибира активирането на този път.
Тъй като mTOR е централен регулатор на клетъчния метаболизъм, ние определихме активността на пътя на гликолизата, която е силно индуцирана в обучени с глюкан моноцити и макрофаги.5 Като краен продукт на анаеробната гликолиза бяха измерени нивата на лактат. Лечението с IL-38 предотвратява повишаването на нивата на лактат в плазмата 4 часа след третиране с LPS и в супернатантите на 72-часов култивиран костен мозък от мишки, обучени с -глюкан и инжектирани с LPS in vivo (фиг. 4B, C).
3.5 Плазмените нива на SNP и IL-38 предсказват силата на индукцията на трениран имунитет
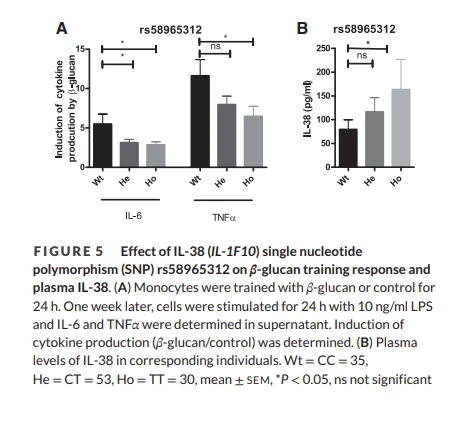
За да потвърдим влиянието на IL-38 върху обучения имунитет при хора, ние изследвахме ефекта на 11 SNP, свързани с IL-38 (IL1F10) и съседния IL-1Ra (IL{{6 }}RN) върху индуцирането на обучен имунитет в човешки PBMC от 118 здрави субекта от групата 200FG.25 Измерихме плазмените концентрации на IL-38 и определихме количествено капацитета на техните моноцити да придобият обучен имунитет. Както е показано на Фигура 5А, индукцията на IL-6 и TNF след in vitro обучение с -глюкан е свързана с SNP rs5896312. В допълнение, плазменото ниво на IL-38 зависи от този SNP, тъй като носителите на два алтернативни алела имат по-високи нива в сравнение с субекти, носещи два референтни алела (фиг. 5B). Не е открита разлика в плазмените нива на IL-1RA на тези индивиди (данните не са показани). В обобщение, инхибирането на тренирания имунитет при здрави доброволци е свързано с по-висока концентрация на плазмен IL-38, което от своя страна зависи от SNP rs5896312.

4. ДИСКУСИЯ
В този доклад ние демонстрираме, че IL-38 значително намалява индукцията на трениран имунитет от -глюкан. Това наблюдение е в съответствие с противовъзпалителните свойства на IL-38 като инхибитор на вродения и адаптивен имунитет.16,25 Когато мишките се обучават с -глюкан, възникват епигенетични модификации в клетките на вродената имунна система, което води до засилени провъзпалителни отговори на вродената имунна система при второ възпалително предизвикателство. Повишеното производство на провъзпалителни цитокини също води до епигенетични модификации в костния мозък7 и намалява смъртността при модели на системни инфекции с C. albicans или S. aureus.8,9 Освен това е доказано, че IL-1 играе основна роля роля в индуцирането на обучен имунитет,7,12 което също е подчертано от Van der Meer et al., които демонстрират, че третирането на мишки с малки дози рекомбинантен човешки IL-1 намалява смъртността при мишки с гранулоцитопения от последваща инфекция с Pseudomonas, концепция по това време, наречена неспецифична резистентност към инфекция.27 Друг член на семейството на IL-1, IL-37, е доказано, че инхибира NLRP3 инфламазомата и освобождаването на активен IL-1, и индуцирането на обучен имунитет.17 Имайки предвид противовъзпалителните свойства на IL-38,28 като способността му да блокира регулирането нагоре на IL-1 при миши модели на подагрозен артрит,18 изследвахме дали IL{{ 25}} може да блокира индукцията на обучен имунитет.
Тук показваме, че в допълнение към предотвратяването на LPS-индуцирано възпаление при мишки, 29 IL -38 отмени индукцията на обучен имунитет и последващия отговор на вторичен стимул с LPS. Прилагането на IL-38 инхибира -глюкан-индуцираното фосфорилиране на Akt/mTOR сигналния път. По подобен начин, IL-38 предотвратява зависимо от -глюкан провъзпалително епигенетично препрограмиране, както е показано чрез намаляване на H3K4me3 върху промотори на Tnfa, Nrlp3, Hk2 и Pfkp в костен мозък на мишка. In vivo лечение с -глюкан и IL-38 и последващо прилагане на LPS доведе до по-ниски концентрации на лактат в плазмата и в ex vivo култивирани супернатанти на костен мозък. По-ниските концентрации на лактат показват, че IL-38 блокира гликолизата, най-вероятно чрез инхибиране на mTOR пътя. Тези наблюдения се потвърждават от анализ на група здрави субекти, при които SNP rs5896312, съседен на гена, кодиращ IL-38, повлиява както плазмените нива на IL-38, така и индуцирането на обучен имунитет в моноцитите ex vivo. Взети заедно, ние показваме, че намаленото ниво на IL-38 води до повишена индукция на обучен имунитет, докато прилагането на рекомбинантен IL-38 инхибира този биологичен отговор.
IL-38 се свързва с IL-36R, а IL-1R9 е неговият предполагаем корецептор.16,30 Съобщава се, че N-терминално съкратеният IL-38 атенюира JNK/AP1 път, което води до намалено производство на IL-6 от макрофагите.30 Тук показваме, че IL-38 също инхибира Akt/mTOR пътя, който е от съществено значение за индуцирането на обучен имунитет.5 Интересно е, че инхибиране на mTOR пътя също е наблюдавано за IL37,31,32, което предполага частично сравним работен механизъм на тези широки противовъзпалителни членове на семейството на IL-1.
Освен положителната роля на тренирания имунитет в защитата срещу инфекция, се предполага и вреден ефект при автоимунни заболявания.3 Следователно, IL-38 може да се използва терапевтично за закаляване на тренирания имунитет при тези заболявания. Специфично се предполага, че тренираният имунитет играе патологична роля при системен лупус еритематозус (SLE), синдром на Sjögren и ревматоиден артрит.3 Предложена е защитна роля на IL-38 при SLE,26 при мишки, подложени на експериментален артрит,33 при болестта на Sjögren IL-38 се регулира нагоре като противовес на IL-36-зависимото възпаление.34 Следователно, нова хипотеза е, че рекомбинантният IL-38 може да се използва за инхибиране на възпалението при автоимунни заболявания чрез инхибиране на тренирания имунитет.
Предполага се също, че тренираният имунитет играе роля при автовъзпалителни заболявания. По-рано сме докладвали, че при пациенти с хипер IgD синдром, дефицитът на мевалонат киназа води до натрупване на мевалонат и фенотип на свръхактивен трениран имунитет се представя като пристъпи на стерилно възпаление. Към днешна дата има ограничени данни за ролята на IL-38 при автовъзпалителни синдроми, свързани с IL-1 или NLRP3-. Инхибирането на IL-1 от IL-38 и хомологията с IL-1Ra налага допълнително изследване на ефектите на IL-38 при тези заболявания и по-специално върху сглобяването на инфламазомата и обработката на IL-1, като противовъзпалителна роля на IL-38 при тези заболявания, управлявани от IL-1 -, може да се предположи. В момента не знаем кой рецепторен път е блокиран от IL-38, което води до намаляване на сигнализирането на IL-1. Ние считаме, че IL-38 може да попречи на IL-36R сигнализирането, което може да свързва IL-36 цитокини и индуцира IL17 и IL-1. Освен това IL-38 може да повлияе на IL-1R9, който също участва в индуцирането на IL-17.35 Самият IL-1 може да индуцира IL-36 цитокини и IL -17, което води до автовъзпалителна верига, която може да бъде прекъсната от IL38. Но най-важното е, че ние показваме, че IL-38 инхибира пътя на mTOR, изяснявайки един от механизмите, които IL-38 използва, за да инхибира производството на IL-1.
Това проучване представя доказателства, че IL-38 инхибира индукцията на обучен имунитет чрез намеса в пътя на mTOR и в сигнализирането на IL1. Освен че се намесва в тези основни сигнални пътища при индуцирането на обучен имунитет от -глюкан, самият IL-38 също индуцира епигенетични промени, което предполага, че отделно от инхибирането на обучения имунитет IL-38 може да има дългосрочно имуносупресивен ефект. Ролята на IL-38 при човешки заболявания, които зависят от обучен имунитет, изисква допълнително характеризиране, например чрез оценка на човешки проби, за да се определи ефектът на IL-38 върху възпалението в контекста на тези заболявания. Метаболитните ефекти на IL-38 и ефектите му върху тренирания имунитет стават особено важни в условията на сърдечно-съдови заболявания. Смята се, че тренираният имунитет допринася за персистиращо възпаление, което характеризира атеросклерозата.36 Един маркер за това персистиращо възпаление е С-реактивният протеин (CRP) и в мета-анализ на повече от 80 000 субекта са открити полиморфизми само в пет имунни гена, които са свързани с циркулиращия CRP, който включва самия CRP, NRLP3, IL-6R и поразително IL-1F10 (IL-38).37 Наскоро съобщихме, че Плазмените концентрации на IL-38 корелират обратно с IL-6 и CRP при субекти с наднормено тегло и са най-намалени при субекти с метаболитен синдром.20 Тези и нашите настоящи наблюдения предполагат, че IL-38 може да бъде ключов играч в ограничаването на метаболитните пътища и възпалението, които са решаващи двигатели на сърдечно-съдовите заболявания.
В заключение, в това проучване ние показваме, че IL-38 е важен противовъзпалителен медиатор, който инхибира индукцията на трениран имунитет. IL-38 инхибира индуцирането на епигенетични и метаболитни промени, предизвикани от -глюкан, и SNP, който корелира с по-високи концентрации на IL-38 при здрави доброволци, води до намалено индуциране на трениран имунитет от -глюкан ex vivo. Тези данни подкрепят хипотезата, че модулирането на IL-38 може да бъде от терапевтична полза при заболявания, при които тренираният имунитет е нерегулиран и допринася за патологията на заболяването и клиничните проби, допринесли с MGN. LABJ, MGN и CAD допринесоха с реактиви/материали. DMG и RJWA написаха/изготвиха и финализираха документа. Всички автори прочетоха и одобриха окончателния ръкопис.
БЛАГОДАРНОСТИ
FLV беше подкрепен от грант VIDI от Холандската организация за научни изследвания. MGN беше подкрепен от ERC Advanced Grant (#833247) и Spinoza Grant на Холандската организация за научни изследвания. CAD беше подкрепен от грант AI 15614 на NIH. RJWA беше подкрепен от грант VENI от Холандската организация за научни изследвания (#09150161810007)
РАЗКРИВАНЕ
Авторите декларират липса на конфликт на интереси.

ПРЕПРАТКИ
1. Netea MG, Joosten LA, Latz E, et al. Обучен имунитет: програма за вродена имунна памет при здраве и болест. Наука. 2016;352:aaf1098.
2. Arts RJW, Carvalho A, La Rocca C, et al. Имунометаболитни пътища при BCG-индуциран трениран имунитет. Клетъчни отчети. 2016;17:2562- 2571.
3. Arts RJW, Joosten LAB, Netea MG. Потенциалната роля на обучения имунитет при автоимунни и автовъзпалителни заболявания. Преден имунол. 2018; 9: 298.
4. Saeed S, Quintin J, Kerstens HH, et al. Епигенетично програмиране на диференциация от моноцити към макрофаги и обучен вроден имунитет. Наука. 2014;345:1251086.
5. Cheng SC, Quintin J, Cramer RA, et al. mTOR- и HIF-1алфамедиирана аеробна гликолиза като метаболитна основа за трениран имунитет. Наука. 2014;345:1250684.
6. Arts RJ, Novakovic B, Ter Horst R, et al. Глутаминолизата и натрупването на фумарат интегрират имунометаболични и епигенетични програми в обучен имунитет. Cell Metab. 2016;24:807-819.
7. Mitroulis I, Ruppova K, Wang B, et al. Модулирането на прогениторите на миелопоезата е неразделна част от обучения имунитет. клетка. 2018;172:147-161 e12.
8. Kleinnijenhuis J, Quintin J, Preijers F, et al. Bacille Calmette-Guerin индуцира NOD2-зависима неспецифична защита от повторна инфекция чрез епигенетично препрограмиране на моноцити. Proc Natl Acad Sci US A. 2012;109:17537-17542.
9. Quintin J, Saeed S, Martens JHA, et al. Инфекцията с Candida albicans осигурява защита срещу повторно заразяване чрез функционално препрограмиране на моноцитите. Микроб клетъчен гостоприемник. 2012;12:223-232.
10. Novakovic B, Habibi E, Wang SY, et al. Бета-глюканът обръща епигенетичното състояние на LPS-индуцирана имунологична толерантност. клетка. 2016;167:1354-1368 e14.
11. Biering-Sorensen S, Aaby P, Lund N, et al. Ранна BCG-Дания и неонатална смъртност сред кърмачета с тегло<2500 g: a randomized controlled trial. Clin Infect Dis. 2017;65:1183-1190
12. Arts RJW, Moorlag S, Novakovic B, et al. BCG ваксинацията предпазва от експериментална вирусна инфекция при хора чрез индукция на цитокини, свързани с обучен имунитет. Микроб клетъчен гостоприемник. 2018;23:89-100 e5.
13. Dinarello CA. Преглед на семейството IL-1 при вродено възпаление и придобит имунитет. Immunol Rev. 2018; 281: 8-27.
14. Dinarello C, Arend W, Sims J, et al. IL-1 семейна номенклатура. Nat Immunol. 2010;11:973.
15. Hahn M, Frey S, Hueber AJ. Новите членове на семейството на цитокини интерлевкин-1 при възпалителни заболявания. Curr Opin Rheumatol. 2017;29:208-213.
16. van de Veerdonk FL, Stoeckman AK, Wu G, et al. IL-38 се свързва с IL-36 рецептора и има биологични ефекти върху имунните клетки, подобни на IL-36 рецепторните антагонисти. Proc Natl Acad Sci US A. 2012;109:3001- 3005.
17. Cavalli G, Tengesdal IW, Gresnigt MS, Nemkov T, Arts RJW, Domínguez-Andrés J, Molteni R, Stefanoni D, Cantoni E, Cassina L, Giugliano S, Schraa K, Mills TS, Pietras EM, Eisenmesser EZ, Dagna L, Boletta A, D'Alessandro A, Joosten LAB, Netea MG, Dinarello CA и др. Противовъзпалителният цитокин интерлевкин 37 е инхибитор на тренирания имунитет. Клетъчни отчети. 2021 г.; В пресата.
18. de Graaf DM, Maas RJA, Smeekens SP, et al. Човешкият рекомбинантен интерлевкин-38 потиска възпалението при миши модели на локално и системно заболяване. цитокин. 2020;137:155334.
19. Towne JE, Renshaw BR, Douangpanya J, et al. Интерлевкин-36 (IL-36) лиганди изискват обработка за пълен агонист (IL-36алфа, IL36бета и IL-36гама) или антагонист (IL-36Ra ) дейност. J Biol Chem. 2011; 286: 42594-42602.
20. Graaf Dennis M, Jaeger Martin, Munckhof Inge CL, et al. Намалените концентрации на В-клетъчния цитокин интерлевкин 38 са свързани с риск от сърдечно-съдови заболявания при лица с наднормено тегло. Европейски вестник по имунология.
21. Oosting M, Kerstholt M, Ter Horst R, et al. Функционална и геномна архитектура на индуцирани от borrelia burgdorferi цитокинови отговори при хора. Микроб клетъчен гостоприемник. 2016;20:822-833.
22. Li Y, Oosting M, Smeekens SP, et al. Функционален геномичен подход за разбиране на вариациите в производството на цитокини при хората. клетка. 2016; 167: 1099-1110.
23. Bekkering S, Blok BA, Joosten LA, Riksen NP, van Crevel R, Netea MG. In vitro експериментален модел на обучен вроден имунитет в човешки първични моноцити. Clin Vaccine Immunol. 2016;23:926-933
24. Nold MF, Nold-Petry CA, Zepp JA, Palmer BE, Bufler P, Dinarello CA. IL-37 е основен инхибитор на вродения имунитет. Nat Immunol. 2010;11:1014-1022.
25. Li Y, Oosting M, Deelen P, et al. Междуиндивидуална вариабилност и генетични влияния върху цитокиновите реакции към бактерии и гъбички. Nat Med. 2016; 22: 952.
26. Rudloff I, Godsell J, Nold-Petry CA, et al. Кратък доклад: интерлевкин38 упражнява противовъзпалителни функции и е свързан с активността на заболяването при системен лупус еритематозус. Ревматичен артрит. 2015;67:3219-3225.
27. Van der Meer JW, Helle M, Aarden L. Сравнение на ефектите на рекомбинантен интерлевкин 6 и рекомбинантен интерлевкин 1 върху неспецифична резистентност към инфекция. Eur J Immunol. 1989;19:413- 416.
28. van de Veerdonk FL, de Graaf DM, Joosten LA, Dinarello CA. Биология на IL-38 и неговата роля при заболяването. Immunol Rev. 2018; 281: 191-196.
29. Xu F, Lin S, Yan X и др. Интерлевкин 38 предпазва от смъртоносен сепсис. Int J Infect Dis. 2018; 218: 1175-1184.
30. Mora J, Schlemmer A, Wittig I, et al. Интерлевкин-38 се освобождава от апоптотичните клетки, за да ограничи възпалителните реакции на макрофагите. J Mol Cell Biol. 2016; 8: 426-438.
31. Nold-Petry CA, Lo CY, Rudloff I, et al. IL-37 изисква рецепторите IL-18Ralpha и IL-1R8 (SIGIRR), за да изпълняват своята многостранна противовъзпалителна програма при вродена сигнална трансдукция. Nat Immunol. 2015;16:354-365.
32. Li TT, Zhu D, Mou T, et al. IL-37 индуцира аутофагия в клетките на хепатоцелуларен карцином чрез инхибиране на пътя PI3K/AKT/mTOR. Mol Immunol. 2017;87:132-140.
33. Boutet MA, Najm A, Bart G, et al. Свръхекспресията на IL-38 индуцира противовъзпалителни ефекти при модели на артрит при мишки и човешки макрофаги in vitro. Ann Rheum Dis. 2017;76:1304-1312.
34. Ciccia F, Accardo-Palumbo A, Alessandro R, et al. Оста на интерлевкин-36алфа се модулира при пациенти с първичен синдром на Sjogren. Clin Exp Immunol. 2015; 181: 230-238.
35. Han Y, Mora J, Huard A, et al. IL-38 облекчава възпалението на кожата и ограничава производството на IL-17 от гама делта Т клетки. Cell Rep. 2019; 27: 835-846.
36. Bekkering S, Joosten LA, van der Meer JW, Netea MG, Riksen NP. Обучен вроден имунитет и атеросклероза. Curr Opin Lipidol. 2013;24:487-492.
37. Dehghan A, Dupuis J, Barbalic M, et al. Meta-analysis of genome-wide association studies in >80 000 субекти идентифицира множество локуси за нива на С-реактивен протеин. Тираж. 2011;123:731-738.
ПОДКРЕПЯЩА ИНФОРМАЦИЯ
Допълнителна подкрепяща информация може да бъде намерена онлайн в раздела Подкрепяща информация в края на статията.
For more information:1950477648nn@gmail.com


