Мишки с условен нокаут на карбоксипептидаза Е проявяват дефицити в ученето и паметта и невродегенерация, част 2
Nov 23, 2023
Nissl и имунофлуоресцентно оцветяване
Животните се перфузират с 4% параформалдехид и се получават замразени срезове от мозъчни тъкани. Мозъчните тъкани бяха разделени на 30 µm срезове за Nissl, двойнокортин (DCX), CPE и MAP2 оцветяване.
През последните години, с непрекъснатото развитие на медицинските технологии, все повече хора започват да обръщат внимание на това как да подобрят паметта си, за да се справят с все по-сложния и бърз ритъм на живот. В същото време двойнокортинът постепенно се превърна в една от горещите теми на дискусия.
И така, какво е даблкортин? Doublecortin е вещество в мозъка, което играе важна роля в насърчаването и поддържането на паметта. Той се разпределя главно в синапсите между невроните в мозъка. Той може да регулира възбудимостта на невроните и да насърчи предаването на информация между невроните, като по този начин подобрява човешките когнитивни способности и памет.
Някои проучвания показват тясна връзка между нивата на двойнокортин и паметта. Например, някои по-възрастни хора имат значително по-ниски нива на даблкортин и в същото време паметта намалява. Не само това, някои неврологични заболявания, като болестта на Алцхаймер и болестта на Паркинсон, също са свързани с понижени нива на двойнокортин.
Не пренебрегвайте обаче, че даблкортинът не е панацея. Може само да помогне на хората да подобрят паметта си до известна степен, но не може да реши всички проблеми с паметта. В допълнение, въпреки че някои експерименти показват, че добавката на двоен кортин може да подобри когнитивните способности и способностите за учене, тези експерименти не могат напълно да докажат, че двойният кортин може да подобри човешкия интелект.
Ето защо, ако искате да подобрите паметта си, не е достатъчно да приемате само дабълкортин. Много други фактори могат да помогнат за подобряване на паметта. Например, повече упражнения, поддържане на добро отношение, редовна работа и почивка и т.н. могат да помогнат на хората да подобрят паметта си.
Накратко, наистина има известна връзка между даблкортин и паметта, но не трябва да възлагаме твърде големи очаквания на даблкортин. Това не означава, че не трябва да обръщаме внимание на даблкортина. Напротив, трябва да разберем по-задълбочено ролята му, за да поддържаме и подобряваме по-добре физическото си здраве. Нека работим заедно, за да подобрим паметта си! Вижда се, че трябва да подобрим паметта си. Cistanche deserticola може значително да подобри паметта, тъй като Cistanche deserticola може също да регулира баланса на невротрансмитерите, като например повишаване на нивата на ацетилхолин и растежни фактори. Тези вещества са много важни за паметта и ученето. Освен това месото може също така да подобри притока на кръв и да насърчи доставката на кислород, което може да гарантира, че мозъкът получава достатъчно хранителни вещества и енергия, като по този начин подобрява мозъчната жизненост и издръжливост.
Щракнете върху познайте добавките за увеличаване на паметта
Заешко антиDCX антитяло (1:1000; Cell Signaling Technology, Бостън, САЩ, 4604S), мише анти-CPE антитяло (1:1000; BD bioscience, Ню Джърси, САЩ, 610758), заешко анти-GFAP антитяло (1:200; Cell Signaling Technology, 80788) и заешко анти-MAP2 антитяло (1:1000; Cell Signaling Technology, 8707) бяха използвани за имунофлуоресценция.
Вторичните антитела бяха Alexa Fluor 594 козе анти-мише вторично антитяло (1:1000; Invitrogen, Carlsbad, CA, 11005) или Alexa Fluor 594 козе анти-заешко вторично антитяло (1:1000; Invitrogen, 11012). Относителният интензитет на флуоресценция на MAP2 и GFAP в хипокампалния Sub и dmPFC при × 100 увеличение беше изчислен с помощта на софтуер ImageJ (Национални институти по здравеопазване, САЩ).
Западно попиване
Тъканите на хипокампа и PFC се приготвят, както е описано по-горе [22]. Лентите се анализират с помощта на софтуер ImageJ. Протеиновите проби бяха пуснати на 10% SDS-полиакриламиден гел електрофореза гелове и прехвърлени върху тонитроцелулозни мембрани (0,22 μm; Millipore, Billerica, MA, USA).
След блокиране с 5% обезмаслено мляко, мембраната се попива с антитела срещу миши анти - -актинови антитела (1:1000, CST, 4967S), миши анти-CPE антитела (1:1000; BD bioscience, 610758), миши анти- BDNF антитяло (1:600, Abcam, UK, ab108319), заешко анти-p-TrkB антитяло (1:1000; Boster, Wuhan, Китай, BM4437), заешко анти-AKT (1:2000, Cell Signaling Technology, 4691S) и анти-p-AKT (1:2000, Cell Signaling Technology, 23430S) за една нощ при 4 градуса.
След промиване, мембраните се инкубират с анти-миши или анти-заешки IgG антитела в продължение на 1 час при стайна температура. Нивото на експресия на протеин за всяка проба се нормализира до -актин.
Статистически анализ
Данните бяха анализирани чрез еднопосочен анализ на дисперсията (ANOVA) за множество групи. Анализът беше извършен с помощта на GraphPad Prism 8.0 (софтуер PrismGraphPad). Всички стойности са посочени със средни стойности ± стандартни грешки (SEM). P < 0.05 се счита за значимо.
РЕЗУЛТАТИ
Анализ на телесно тегло и глюкоза в плазмата
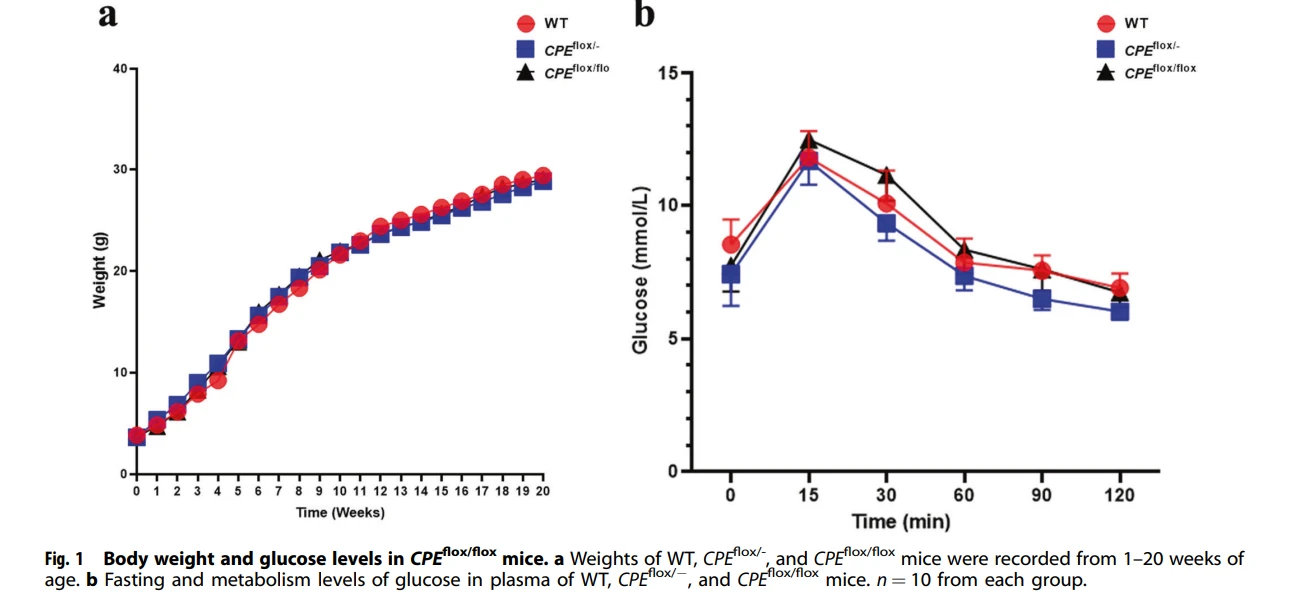
Мишки на възраст 1–20 седмици бяха използвани за анализ на телесното тегло и глюкозата в плазмата (фиг. 1а). Резултатите показват, че няма значителни разлики в телесното тегло между WT, CPEflox/− и CPEflox/flox мишки. Нивата на гладуване и метаболизма на глюкозата в плазмата бяха оценени на 10-седмична възраст (фиг. 1b). Открихме ногенотипни разлики сред WT, CPEflox/− и CPEflox/flox животни.

Загуба на учене и памет при CPEflox/flox мишки
От теста на открито, ние наблюдавахме, че няма разлика между всяка група генотип за изминатото разстояние в апарата на открито (фиг. 2а). Това показва, че автономното поведение и поведението на запитване на CPEflox/flox мишки не е засегнато. За учене и памет при мишки използвахме тест за разпознаване на обекти (фиг. 2b). Наблюдавахме, че CPEflox/flox мишките прекарват значително по-малко време върху нови обекти, отколкото WT мишките. Y-лабиринтът и FCT-краткият срок бяха проведени за оценка на краткосрочната памет при мишки (фиг. 2c-e).
В теста за Y-лабиринт, мишките WT и CPEflox/− прекарват повече време в новилар, отколкото мишките CPEflox/flox. За краткосрочен FCT, краткосрочното задържане на паметта на CPEflox/flox мишки е по-лошо от това на WT и CPEflox/- мишки. За дългосрочно запазване на паметта (фиг. 2f), тестът за кондициониране на страха показва, че мишките WT и CPEflox/− имат значително по-добра памет за шок на крака, отколкото мишките CPEflox/flox.
CPEflox/flox мишки показват дегенерация на субикулум (Sub).
Използвахме Western blotting, за да характеризираме експресията на нивата на CPE в хипокампуса в сравнение с вътрешния контролен протеин -актин (Фиг. 3a, b). Резултатите показват, че CPE протеинът в хипокампуса на CPEflox/flox мишки намалява значително. След парадигмата на стреса, подрегионът на CPEflox/flox мишки напълно дегенерира, но не и преди носенето, докато хипокампалното образуване на WT мишки беше непокътнато (фиг. 3c).
CPEflox/flox мишки показват намаляване на GFAP и MAP2 интензитета и TrkB сигнализиране в хипокампуса
Ние оценихме експресията на Akt/mTOR-медиирани протеини, свързани с BDNF/TrkBpathway. Western blot анализ на BDNF протеини показа, че в сравнение с WT мишки, съдържанието на BDNF протеин в хипокампуса на CPEflox/flox мишки показва равни количества в сравнение с WT и CPEflox/- мишки (фиг. 4a, b). P-TrkB протеинът е значително намален при CPEflox/flox мишки в сравнение с WT и CPEflox/- мишки (Фиг. 4a, c).
Резултатите показват, че CPEflox/flox мишки показват намаление на хипокампалната фосфорилирана Akt и фосфорилираната mTOR експресия в сравнение с WT мишки (Фиг. 4a, d, e). Резултатите от имунофлуоресценцията показват намалена експресия на CPE в хипокампалния суб (фиг. 4f, g). Използвахме анти-MAP2 имунооцветяване, за да покажем интензитета на MAP2 в хипокампалния суб и хилусния регион (фиг. 4f).
Резултатите от имунофлуоресценцията показват намалена интензивност на MAP2 в Sub andhilus на CPEflox/flox мишки, но не и при WT и CPEflox/- мишки (фиг. 4f, h,i). В допълнение, DCX имунооцветяването показа, че неврогенезата в DG на хипокампуса при CPEflox/- мишки е подобна на тази при WT мишки, но значително намалена при CPEflox/flox мишки (фиг. 4f, j). Интензитетът на GFAP в хипокампалния Sub беше значително по-нисък при CPEflox/flox мишки, отколкото при WT мишки (фиг. 4f, k).
CPEflox/flox мишки показват намаляване на интензитета на GFAP и MAP2 в dmPFC
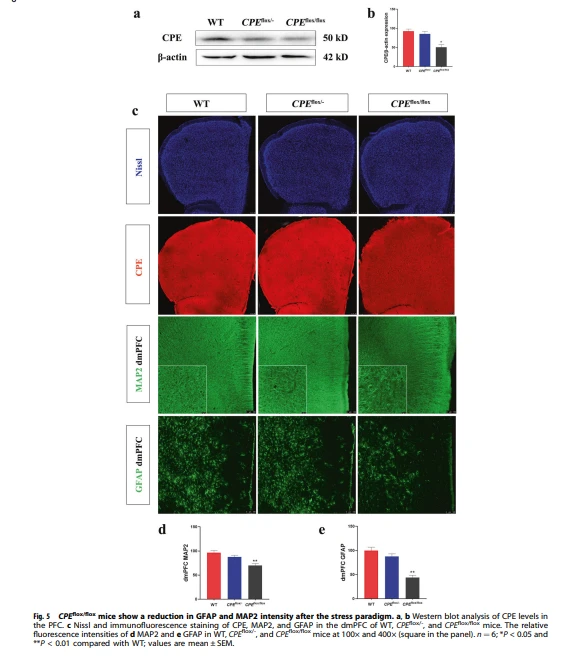
Използвахме Western blotting, за да характеризираме експресията на CPElevels в dmPFC в сравнение с -актин (фиг. 5a, b). Резултатите показват, че CPE протеинът в dmPFC на CPEflox/flox мишки е значително намален. След парадигмата на стреса, резултатите от имунофлуоресценцията показват намалена интензивност на MAP2 при dmPFCCPEflox/flox мишки, но не и при WT мишки (фиг. 5c, d). В допълнение, интензитетът на GFAP в dmPFC е значително по-нисък при мишките CPEflox/flox, отколкото при мишките WT (фиг. 5c, e).
ДИСКУСИЯ
В това проучване ние генерирахме CPE-cKO мишка, за да изследваме фенотипа на загуба на функция на CPE в невроните на мозъка. Предишно проучване показа, че мишките CPE-KO развиват затлъстяване и диабет и стават по-тежки на 8-седмична възраст от мишките WT [5]. Нашите измервания показаха, че няма значителна промяна в телесното тегло, нивата на плазмената глюкоза и глюкозния толеранс на CPEflox/flox мишки в сравнение с WT мишки.
Проучванията на поведението установиха, че парадигмата на стреса за CPEflox/flox мишки влошава ученето и паметта. В допълнение, стресът и намалената експресия на CPE доведоха до суб-дегенерация на хипокампа, намалена неврогенеза в DG и намалена невронална плътност в суб-хипокампал и dmPFC.


CPE е ензим, обработващ прохормон, който обработва прохормон, който разцепва С-терминалния основен остатък от прекурсора на енкефалин, за да генерира енкефалин [23]. Като аневропротективен фактор, CPE играе важна роля в ембрионалното и постнаталното развитие на мозъка [24].
Доклад за случай показва, че хомозиготна безсмислена мутация в CPE гена е свързана с клинични фенотипове, съставени от затлъстяване, интелектуална недостатъчност и хипогонадизъм [2]. CPEfat/fat мишки показват понижение в нивата на CPE и повишаване на нивата на проинсулин, което подкрепя ролята на CPE в инсулиновата дисрегулация [25]. Спонтанните точкови мутации в CPE намаляват ензимната активност, което води до тежко затлъстяване [4]. CPE-KO мишки развиват диабет и тези мишки имат високи нива на глюкоза на възраст 8-10 седмици.
Високото ниво на глюкоза се поддържа приблизително 2 месеца и след това започва да намалява, което предполага обратим диабетен фенотип [26]. Нашето проучване показа, че няма значителна разлика между CPEflox/flox и WT мишки в нивата на плазмената глюкоза и глюкозния толеранс на възраст 10 седмици. CPE-KO мишките започват да наддават на тегло приблизително на 4-седмична възраст и са по-тежки от WT котилата с 8 седмици [27]. Доказано е, че мишките CPE-KO показват повишена консумация на храна.
Повишената консумация е резултат от неправилни сигнали, контролиращи диетичното поведение, включващи баланса на орексигенни и анорексични невропептиди в хипоталамуса [5]. Правилното съзряване на тези невропептиди изисква правилен транспорт и обработка на тези невропептиди, в които CPE играе важна роля [28].
Записахме телесното тегло на мишките от 1 до 20 седмици и резултатите показаха, че изтритите CPE в неврони не повлияват телесното тегло. В нашето проучване CPE-cKO не промени теглото или консумацията на глюкоза. Може да се окаже, че условният нокаут на CPE в невроните не засяга сигналите, контролиращи диетичното поведение. Следователно, такава CPE-cKO мишка е ценен модел за изследване на фенотипа на загуба на функция на CPE в невроните на мозъка.
CPE играе различни роли в централната нервна система, включително поддържане на нормална когнитивна функция, правилна невронна структура и оцеляване на невроните [3]. Смята се, че CPE играе роля в клетъчната обработка на прекурсорни протеини. Той също така има невропротективна активност, независимо от неговата ензимна активност, действайки извънклетъчно като невротрофичен фактор [25]. Демонстрирана е нова роля на CPE в невроразвитието и разклоняването на проксималните дендрити, което е необходимо за миграцията и дендрогенезата на кортикалните неврони [29]. CPE-KO мишки, подложени на стрес без активност на CPE, проявяват много поведенчески аномалии, включително дефицит на учене и памет [30]. Предишни проучвания са оценили процесите на учене и памет, когато животните са били на възраст приблизително 2 месеца, когато теглото на мишките току-що е започнало да се различава [31].
Признато е, че стресът влияе върху хипокампуса на различни нива на анализ [32]. Поведенчески проучвания са установили, че стресът като цяло уврежда различни зависещи от хипокампуса задачи за учене и памет [20]. Неврално изследванията върху животни разкриха, че стресът променя произтичащата от това синаптична пластичност и свойствата на запалване на невроните на хипокампа [33]. В структурно отношение проучванията показват, че стресът променя морфологията на невроните, потиска производството на нови гранулирани неврони в зъбчатия гирус и намалява обема на хипокампа [34]. Извършихме тестове за разпознаване на обекти, Y лабиринт и тестове за кондициониране на страх върху CPEflox/flox мишки на възраст 10 седмици. За разпознаване на обекти WT мишките показаха неочевидно предпочитание към нов обект.

За разлика от това, мишките CPEflox/flox не успяха да покажат предпочитание към който и да е обект през тези периоди. Y лабиринтът беше използван за оценка на краткосрочната памет на мишките. WT мишките бяха по-любопитни от мишките CPEflox/flox да изследват области, които не са посещавали преди . В допълнение, тестът за състояние на страх беше използван за оценка на краткосрочната и дългосрочната памет за разпознаване.
WT мишките са по-ефективни при разпознаването на условни стимули от CPEflox/flox мишки. Трябва да се отбележи, че условните CPE KO мишки бяха генерирани наскоро под Pomc промотор, който нокаутира клетки, които експресират проопиомеланокортин. Тези CPE-cKO мишки показват нормална физиология, поведение и нива на невропептиди [35]. За разлика от това, нашите условни CPE KO мишки под промотора Camk2a показаха нарушена памет и невродегенерация, подкрепяйки хипотезата, че CPE е неврозащитен протеин срещу стрес [36].
Изследвания върху CPE-KO мишки разкриха множество нива на аномалии. Поведенчески, мишките CPE-KO показват подобно на депресия поведение и увреждания в обучението. Електрофизиологичният анализ показва, че дългосрочното потенциране на хипокампуса при CPE-KO мишки е нарушено. Морфологичният анализ показа, че хипокампусът се дегенерира след стрес, когато CPE беше нокаутиран [31]. CPE се регулира при различни видове стрес и е важен за защитата на невроните [3]. Ефектът от дефицита на CPEпротеин върху префронталния кортекс при стрес не е докладван.
Няма съмнение, че поведението на ученето и паметта изисква взаимодействие между широкомащабни мозъчни мрежи. Паметта и припомнянето зависят от взаимодействията между префронталния кортекс и хипокампуса [37]. Следователно веригата на хипокампалния префронтален кортекс играе ключова роля в когнитивната регулация и консолидирането на паметта [38]. При CPE-KO мишки, делецията на CPE протеина причинява увреждане на хипокампалните CA3 неврони [39].
Предишно проучване показа, че стресът при отбиване регулира нагоре секрецията на глюкокортикоиди и индуцира нервно изстрелване в DG гранулозни клетки за увеличаване на секрецията на глутамат, което води до ексцитотоксичност и смърт на CA3 неврони в CPE-KO мишки [40]. Възможно е cKO на CPE гена в невроните да има по-малък ефект върху ендокринната система.
Доказано е също, че след преходна глобисхемия, невроните в областта CA1 са по-уязвими и показват само преходно увеличение на експресията на CPE [41]. Генетичните лезии на хипокампалните субрегиони показват различни функции в ученето и паметта [42]. Класическата "трисинаптична" верига (DG > CA3 > CA1 > Sub) е топологично подредена и частично неприпокриваща се дорзална към дорзална, средна, междинна към междинна и вентрална към вентрална проекция [43].
Основната организация на образуването на хипокампа при бозайници е еднопосочна верига, в която информацията, предавана от повърхностния слой на енториналния кортекс към DG, се обработва последователно в подполето CA: CA3, CA2 и CA1. Дорзалната СА1 изпраща основната си проекция директно към вътрешния слой на енторинален кортекс 5 или индиректно през дорзалната суб (заобиколен кръг) [42].
Една от интересните разлики между директните и индиректните изходни пътища на хипокампа е, че в последния, дорзалните подпроекти към слой 5 на енториналкортекса и много кортикални и субкортикални мозъчни области [44]. Някои клинични проучвания показват, че подполетата DG и CA са селективно активирани по време на формирането на епизодична памет, докато Sub е активно по време на припомнянето на епизод [45].
В това проучване експресията на CPE протеин в хипокампуса и dmPFC на CPEflox/flox мишки намалява значително. Следователно невронното увреждане и апоптозата в субрегиона водят до дефицит на паметта. При CPEflox/flox мишки, неврологичните дефицити може да се дължат на частични компенсаторни механизми, включително увреждане на хипокампалните Sub и dmPFC неврони.
Астроцитите медиират процесите на развитие, физиологичните и патологичните процеси [46]. Те се считат за ключови поддържащи елементи на невронната функция, осигурявайки структурна и метаболитна подкрепа за невроните [47]. Астроцитите влияят върху набирането и функционирането на неврони на локално и мрежово ниво [48]. Ние открихме, че броят на астроцитните клетки в хипокампалния Sub и dmPFC значително е намалял, вероятно защото CPE е важен при диференциацията на невралните стволови клетки към астроцитите [49].
BDNF се счита за важен регулатор на множество стресори [50]. Той регулира синаптичната трансмисия и дългосрочното потенциране в хипокампуса и участва във формирането на определени форми на памет [51]. Наскоро беше посочено, че CPE е критичен растежен и трофичен фактор, защитаващ хипокампуса срещу индуцирана от стрес смърт на пирамидален неврон и когнитивно увреждане [36]. В това проучване открихме, че експресията на BDNF е равна на тази при WT мишки. Този резултат показва, че въпреки експресията на подобни нива на BDNF, CPEflox/flox мишки показват пълна невродегенерация със силен стрес.
ЗАКЛЮЧЕНИЕ
В обобщение, това проучване показва, че CPEflox/flox мишки проявяват нарушено учене и памет под парадигмата на стреса, включваща емоционален и физически стрес, свързан с отбиването.

Намалената CPE експресия и парадигмата на стреса доведоха до хипокампална суб-дегенерация, намалена неврогенеза в DG и намалена невронна плътност в хипокампалната суб-дегенерация и dmPFC.
ПРЕПРАТКИ
1. Cawley NX, Wetsel WC, Murthy SR, Park JJ, Pacak K, Loh YP. Нови роли на карбоксипептидаза Е в ендокринната и невронна функция и рак. Endocr Rev.2012;33:216–53.https://doi.org/10.1210/er.2011-1039
2. Durmaz A, Aykut A, Atik T, Özen S, Ayyıldız Emecen D, Ata A, et al. Нова причина за синдрома на затлъстяването, свързана с мутация в гена на карбоксипептидазата, открита при трима братя и сестри със затлъстяване, интелектуална недостатъчност и хипогонадотропен хипогонадизъм. J Clin Res Pediatr Endocrinol. 2021; 13: 52-60.https://doi.org/10.4274/jcrpe.galenos.2020.2020.0101
3. Ji L, Wu HT, Qin XY, Lan R. Дисекция на карбоксипептидаза Е: свойства, функции и патофизиологични роли при заболяване. Endocr Connect. 2017; 6: R18–R38.https://doi.org/10.1530/ec-17-0020
4. Naggert JK, Fricker LD, Varlamov O, Nishina PM, Rouille Y, Steiner DF, et al. Хиперпроинсулинемията при затлъстели мазнини/мазни мишки е свързана с карбоксипептидазна емутация, която намалява ензимната активност. Нат Генет. 1995; 10: 135-42.https://doi.org/10.1038/ng0695-135
5. Cawley NX, Zhou J, Hill JM, Abebe D, Romboz S, Yanik T и др. Мишката с нокаут на карбоксипептидаза Е проявява ендокринологични и поведенчески дефицити. Ендокринология. 2004; 145: 5807-19.https://doi.org/10.1210/en.2004-0847
6. Bosch E, Hebebrand M, Popp B, Penger T, Behring B, Cox H, et al. BDV синдром: възникващ синдром с дълбоко затлъстяване и забавяне на неврологичното развитие, наподобяващ синдрома на Прадер-Уили. J Clin Endocrinol Metab. 2021; 106: 3413-27.https://doi.org/10.1210/clinem/dgab592
7. Chen H, Jawahar S, Qian Y, Duong Q, Chan G, Parker A и др. Мисенс полиморфизмът в гена на човешката карбоксипептидаза Е променя ензимната активност. HumMutat. 2001; 18: 120-31.https://doi.org/10.1002/humu.1161
8. Zhu X, Wu K, Rife L, Cawley NX, Brown B, Adams T и др. Карбоксипептидаза Е е необходима за нормалното синаптично предаване от фоторецепторите към вътрешната ретина. J Neurochem. 2005; 95: 1351-62.https://doi.org/10.1111/j.1471-4159.2005.03460.x
9. Griego E, Herrera-López G, Gómez-Lira G, Barrionuevo G, Gutiérrez R, Galván EJ. Функционална експресия на TrkB рецептори върху интерневрони и пирамидални клетки от зона CA3 на хипокампуса на плъх. Неврофармакология 2021; 182: 108379https://doi.org/10.1016/j.neuropharm.2020.108379
10. Xiao L, Sharma VK, Toulabi L, Yang X, Lee C, Abebe D и др. Невротрофичен фактор 1, нов тропин е от решаващо значение за предотвратяването на индуцирана от стрес хипокампална CA3 клетъчна смърт и когнитивна дисфункция при мишки: сравнение с BDNF. Транспсихиатрия. 2021; 11:24https://doi.org/10.1038/s41398-020-01112-w
For more information:1950477648nn@gmail.com