Молекулярна еволюция на бактерицидния/повишаващ пропускливостта протеин (BPIFA1), регулиращ вродените имунни отговори при бозайници, част 1
May 29, 2023
Резюме:
Бактерициден/повишаващ пропускливостта протеин, основен фактор на вродената имунна система на бозайниците, участва в естествената имунна защита срещу нахлуващи бактерии. BPIFA1 активно допринася за защитата на гостоприемника чрез множество механизми, като антибактериални, повърхностно активни вещества, контрол на течността на повърхността на дихателните пътища и имуномодулаторни дейности. Въпреки това, еволюционната история и силите на селекция на гена BPIFA1 при бозайници по време на адаптивната еволюция са слабо разбрани. Това проучване изследва гена BPIFA1 на хората в сравнение с този на други видове бозайници, за да оцени селективния натиск, получен от адаптивната еволюция. За да оценим дали е настъпила положителна селекция или не, ние използвахме няколко различни теста за възможност (M1 срещу M2 и M7 срещу M8).
Пропорциите на положително избраните места бяха значителни, с логаритмична стойност на вероятността от 93,63 за протеина BPIFA1. Сървърът за подбор беше използван на същия набор от данни, за да потвърди отново положителната селекция за конкретни сайтове чрез използване на модела на механично-емпиричната комбинация, като по този начин предостави допълнителни доказателства в подкрепа на констатациите на положителната селекция. Имаше убедителни доказателства за положителни сигнали за селекция в гените BPIFA1 на видове бозайници, което беше по-значимо за признаци за селекция и създаване на сигнали.
Протеинът BPIFA1, известен също като LPLUNC1 или ген 6, свързан с назофарингеален карцином (NAG6), е протеин, силно експресиран в горните дихателни пътища и устната кухина. Протеинът BPIFA1 е тясно свързан с имунитета.
Проучванията показват, че протеинът BPIFA1 има антибактериални и имуномодулиращи ефекти. Протеинът BPIFA1 може да се свърже с инвазивната Escherichia coli и да разруши нейната клетъчна мембрана, като по този начин играе антибактериална роля. В допълнение, протеинът BPIFA1 играе имуномодулираща роля чрез активиране на Toll-подобен рецептор (TLR) 4 и TLR2 пътища, насърчавайки възпалителни реакции, апоптоза и активиране на имунни клетки.
Връзката между протеина BPIFA1 и респираторните заболявания също е широко проучена. Например, проучванията показват, че нивото на експресия на протеин BPIFA1 при респираторни заболявания като бронхиална астма и хронична обструктивна белодробна болест (COPD) е тясно свързано с тежестта на заболяването. Особено при условия на инфекция, нивото на експресия на протеин BPIFA1 може да бъде значително повишено, като по този начин участва в регулирането на имунния отговор на дихателната система и баланса на флората.
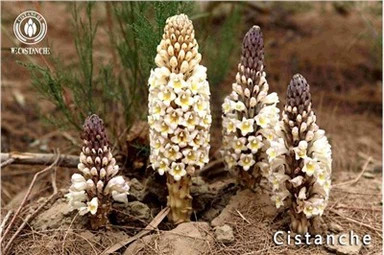
Следователно ролята на протеина BPIFA1 в имунната система не може да бъде пренебрегната и връзката му с респираторни заболявания и инфекции се нуждае от допълнително задълбочено проучване. Затова трябва да обърнем специално внимание на подобряването на имунитета си. Цистанче има значителен ефект за подобряване на имунитета. Полизахаридите в месото могат да регулират имунния отговор на човешката имунна система, да подобрят способността за стрес на имунните клетки и да подсилят имунните клетки. бактерициден ефект.

Кликнете, за да научите пълнозърнестите храни
Извършихме тестове за вероятност, сравнявайки различни модели, базирани на съотношения dN/dS, за да разпознаем специфични кодони при положителен селективен натиск. Ние идентифицирахме положително избрани места в LBP-BPI домейна на BPIFA1 протеини в генома на бозайник, включително липидно-свързващ домен с много висока степен на селективност за DPPC. BPIFA1 активира вродената имунна система на горните дихателни пътища в отговор на множество генетични сигнали в генома на бозайниците. Тези открития подчертават еволюционния напредък в имунорегулаторните ефекти, които играят значителна роля в антибактериалната и антивирусната защита на видовете бозайници.
Ключови думи:
BPIFA1; бактерицидно; имунна система; молекулярна еволюция; положителна селекция.
1. Въведение
Протеинът, повишаващ бактерицидната пропускливост (BPI) е високоефективен антимикробен протеин, който свързва и неутрализира липополизахаридите, освободени от външната мембрана на бактериите [1]. Известно е, че генът член 1 на семейството A (BPIFA1), съдържащ сгъване, има ефекти върху локалната имунна система и тези ефекти могат потенциално да повлияят на растежа и инвазията на микроорганизми [2]. Един от потенциалните механизми, които са в основата на тази връзка, е способността на BPIFA1 да подобри абсорбцията на бактерии от фагоцитни клетки и тяхната способност да ги унищожават [3].
Въпреки че имат минимално сходство на последователностите, BPI има два домейна, които приемат една и съща структурна гънка [1,4]. Нахлуването на Грам-отрицателни бактерии води до интегриран отговор на гостоприемника, улеснен от присъствието на липополизахарид-свързващ протеин (LBP). LBP е ендотоксин-свързващ протеин, тясно свързан с и координиран с BPI [5]. BPIFA1 контролира мукозната микробиота и изходното сигнализиране на интерферона. SPLUNC1 (известен преди като BPIFA1) е член на семейството, съдържащ протеинова гънка, с антибактериални, повърхностно активни и имуномодулиращи дейности, всички от които допринасят за защитата на гостоприемника. Дихателната система е основното място на неговата експресия [6]. SPLUNC1, човешкият хомолог на миши ген PLUNC, проявява същия модел на експресия в горните дихателни пътища и назофарингеалните области като неговия миши хомолог. Антибактериалното действие срещу грам-отрицателни бактерии се проявява от кодирания антимикробен протеин [5]. При недребноклетъчен рак на белия дроб, той може да служи като потенциален молекулярен маркер за локализиране на микрометастази. Множество варианти на транскрипт са открити в резултат на алтернативното снаждане на 3' нетранслираната област; въпреки това е разбрана пълната дължина на само три от тези варианти на транскрипция [7].
И мишките, и хората имат значителни нива на генна експресия на BPIFA1 в горната част на трахеята, но тази експресия намалява с разстоянието от трахеята, достигайки минимум при бифуркацията на главните стволови бронхи и става неоткриваема в периферията на белите дробове. [8]. Обширните изследвания на генната експресия при мишки и хора не успяха да открият BPIFA1 в периферната белодробна тъкан [9]. С изключение на много ниските нива на експресия на BPIFA1 mRNA в миши тимус, сърце на плъх и обонятелна лигавица, BPIFA1 не се експресира в никакви органи или тъкани извън дихателната система на гризачи [10]. Няма индикация, че BPIFA1 иРНК присъства в някоя от следните човешки тъкани: сърце, черен дроб, мозък, стомах, тънки черва, плацента, скелетни мускули, панкреас, далак, нормални лимфни възли, периферни лимфоцити, простата, тестиси или яйчник [11].

Експресията на BPIFA1 mRNA следва модел на разпространение, който е много сравним в ембрионални и възрастни тъкани. Този модел се наблюдава и в двата вида тъкани [1]. Свръхекспресията на BPIFA1 в трансгенни мишки продуцира алвеоларни макрофаги с повишена опсонизация и фагоцитоза на въглеродни нанотръби в модел на контролирано възпаление на дихателните пътища [12]. Освен това е показано, че комензалните грам-отрицателни нанобактерии се локализират съвместно с BPIFA1 в епителните клетки на раковите тъкани на назофаринкса [13]. Пробите са взети от пациенти, за които преди това е установено, че имат назофарингеален карцином. Резултатите от скорошно проучване предполагат, че взаимодействията между BPIFA1 и небактериални LPS могат да смекчат възпалителния отговор на тялото, причинен от небактериални LPS. [1].
Обхватът на неговите антибактериални ефекти и запазването на структурата му при дишащи въздух гръбначни предполагат, че BPIFA1 е еволюирал, за да осигури основни защитни способности на гостоприемника [14]. Въпреки това, поради местоположението си в проксималните дихателни пътища и високото си ниво при основни условия, BPIFA1 може да бъде незаменим. Това е така, защото антимикробните ефектори са изобилни при животните [15]. Следователно BPIFA1 изглежда има най-значимите ефекти за избягване на инфекцията и нейното изчистване преди инвазията на патогени. Бактериалните инфекции в дихателната система могат да бъдат предотвратени благодарение на тези функции, които могат да сигнализират за активиране на имунитета и подобрена регулация на други функции на дихателните пътища [15].
Смята се, че адаптивните промени в отговор на изискванията на околната среда са ограничени от биофизични фактори, но структурните аспекти на местата, които съдържат адаптивни промени, не могат да бъдат предвидени от никоя еволюционна теория [16]. Това е така, защото биофизичните ограничения ограничават видовете замествания, които са разрешени за поддържане на протеиновата функция [17]. Положителната селекция може да бъде по-разпространена в участъци от протеини, където се очаква мутациите да имат по-слаб ефект, отколкото в други части на протеина, въпреки че това не е доказано (напр. места за алостерична регулация) [18]. Въпреки това се очаква функционалните региони да останат значително запазени по време на еволюцията, въпреки че адаптивните промени са свързани с бързото фиксиране на благоприятни мутации [19]. Молекулярната еволюция на протеиновите последователности е значително повлияна от процеса на естествен подбор.
Последните разработки в секвенирането на генома и надеждните методи за изводи на филогенетично и популационно ниво направиха възможно провеждането на бърза и стабилна оценка на еволюционните скорости и адаптации, които се ръководят от естествения подбор [20]. Както на филогенетично, така и на популационно ниво е извършена значителна работа за изграждане на методи за извод. Освен това, нарастващата достъпност на протеиновите структурни и функционални данни позволи на изследователите да изследват влиянието на структурните и функционални ограничения върху еволюцията и адаптацията на протеиновите последователности [16]. Поради ограниченията, наложени от техните структури и функции, скоростите на еволюция и адаптация са различни за различните протеини и места в рамките на един и същ протеин [19].
По-голямата част от функциите на клетката са сложно преплетени с регулаторните мрежи на генната експресия, които позволяват на организмите да понасят по-високи нива на инфекция или да смекчат ефектите от тези инфекции [21]. Повечето от компонентите, които изграждат клетъчната физиология, са тясно свързани с тези системи за регулиране на генната експресия, които често са стари еволюционни адаптации [22]. Тези механизми са предизвикали значителна степен на интерес в изследванията, които са използвали ограничен набор от моделни видове, за които е налична генетична информация [23]. Малко се знае обаче за механизмите, довели до еволюцията на тези системи или как те се адаптират към различни условия на околната среда с напредването на развитието.
Това проучване има за цел да изследва еволюционния произход на гена BPIFA1, за да разкрие неговите физикохимични характеристики и да приложи сравнителна геномика, за да предостави оценка на гена при различни видове бозайници. Проведохме задълбочени сравнителни проучвания на гена за бактерициден/повишаващ пропускливостта протеин (BPIFA1), който регулира вродения имунен отговор при бозайници, за да разберем по-добре как работят тези гени. Има възможност селективният натиск да има значителен ефект върху развитието на адаптацията. В това изследване ние изследваме историята на тези гени в различни видове гръбначни животни, както и как генетичното разнообразие и естественият подбор са повлияли на развитието на това генно семейство във времето.
2. Материали и методи
2.1. Извличане и анализ на последователност
Аминокиселинните и кодиращите нуклеотидни последователности на гена BPIFA1 в 34 вида бозайници, включително хора като референтни видове в това проучване, бяха събрани от GenBank (https://www.ncbi.nlm.nih.gov/genbank, достъп на 20 септември 2021 г.) и те бяха подравнени с помощта на инструмента Clustal Omega в софтуера MEGA 6 [24]. Методът на максималната вероятност беше използван в софтуера MEGA 6 за генериране на филогенетично дърво за гена BPIFA1. Това дърво е конструирано въз основа на еволюционните връзки между гените. Тестът за първоначално зареждане изчислява средния брой замествания на място и средната дължина на разклонението чрез използване на метод на максимална вероятност с 1000 повторения за определяне на таксономично групиране. Този метод беше използван за избор на топология за по-напреднали стойности на логаритмична вероятност [25,26]. Имената на видовете и номерата за достъп, използвани за изследване на гена BPIFA1, са предоставени в допълнителна таблица S1.
2.2. Анализ на селекцията
Бяха използвани подходи за максимална вероятност за сравняване на съотношенията на dN/dS за всяко място на кодон, за да се идентифицират специфични кодони в генни последователности на BPIFA1 на бозайници, подложени на положителна селекция [27,28]. CODEML, изпълнен в PAML [29] и уеб сървъра DATA MONKEY (https://www.datamonkey.org, достъпен на 29 септември 2021 г.) [30] бяха използвани за анализа, а резултатите бяха определени с помощта на коефициенти на заместване на кодони, които бяха значително по-високи от 1 за кодони при положителна селекция. Първоначалната стъпка на това изследване беше да се определи дали е настъпила положителна селекция, като се използва тестът за максимално съотношение на вероятност.
Този анализ определи наличието на места със съотношение dN/dS по-голямо от едно. В това проучване сравнихме дискретен (генеричен) модел, който изпълнява тази функция с нулев модел, който забранява появата на сайтове със стойност, по-голяма от 1 [31]. Анализите бяха сравнени с помощта на разпределение на вероятностен логаритъм (2∆l) с df=4. Нулевата хипотеза (M7) твърди, че разпределението е ограничено от стойностите 0 и 1. Алтернативен модел (M8) с два параметъра, омега (ω) и бета (), позволява извличането на стойност от наборът от данни, който може да бъде по-голям от 1 [27]. Всички анализи, използващи вероятност за фиксиран ефект (FEL), преброяване на предшественици с единична вероятност (SLAC) и вероятност за произволен ефект (REL), установиха, че генът BPIFA1 е бил обект на положителна селекция, когато са сравнени глобалните стойности за синонимни и несинонимни различия на всяко място [32].
Вторият етап беше да се използва оценката на максималната вероятност за локализиране на позиции на аминокиселини, които са били обект на положителна селекция през цялата еволюция. За постигането на тази цел беше използвана теоремата на Bayes, която предсказва постериорните вероятности на сайтовете, които са обект на положителна селекция. Наблюдава се положителна селекция, действаща на аминокиселинни места със задни вероятности, вариращи от 95 процента до 99 процента [33]. Аминокиселинните остатъци с голяма вероятност стойността да е по-голяма от единица бяха подложени на селективна процедура. Швейцарският модел и Phyre 2 (http://www. sbg.bio.ic.ec.k/pyre/html, достъпен на 28 септември 2021 г.) са уеб базирани приложения, които показват местоположенията на благоприятно избрани аминокиселини върху протеинови структури [34].
Ние прогнозирахме местоположението на еволюционното запазване на нуклеиновите киселини и аминокиселините в протеина, използвайки инструмента ConSurf (http://consurftest.tau.ac.il, достъпен на 28 септември 2021 г.), който се основаваше на филогенетичната връзка между последователности [ 35]. Последователността на подредения кодон на BPIFA1 беше изследвана в Selecton версия 2.2 (http://secton.tau.ac.il, достъпна на 28 септември 2021 г.), което позволява определяне на разнообразните съотношения на различни кодони вътре в подредените последователности. Тези съотношения бяха измерени с помощта на подхода на Bayesian inference чрез различни тестове за вероятност. Това беше извършено, за да се потвърдят положително избрани кодони [36]. Освен това резултатите от подбора бяха показани в различни цветове, за да обозначат различните критерии за подбор.

2.3. Рекомбинационен анализ
За да намерим доказателства за рекомбинация, ние извършихме процедура за избор на модел въз основа на статистическата вероятност, която може да пресее много подравнявания на последователности в търсене на точки на прекъсване и да забележи вероятна рекомбинантна ДНК. Тази техника използва генетичен алгоритъм за търсене на подравняванията на няколко последователности за точки на прекъсване на рекомбинация, за да постигне целта си. Подходът GARD е лесен за възприемане, лесно разширяем и много паралелен. Обширни симулационни експерименти показаха, че методът побеждава други текущи инструменти в почти всички случаи, особено по отношение на точността.
За да се изследват доказателствата за рекомбинация, нуклеотидните последователности първо бяха оценени, за да се идентифицират хаплотипове (Na) и да се оценят полиморфните места (S), средният брой нуклеотидни разлики (K) и нуклеотидното разнообразие (π) с помощта на софтуера DnaSP 5.10 [37]. ]. Откриването на точки на прекъсване и оценката на рекомбинантните сигнали в нуклеотидните последователности бяха извършени с помощта на онлайн инструмента GARD на уеб сървъра Datamonkey [38]. Освен това, използването на GARD за скрининг на последователности за рекомбинация гарантира, че методите, фокусирани върху идентифицирането на положителна селекция, имат приемливи статистически характеристики.

2.4. Анализ на протеин-протеинови взаимодействия
Голям интерес е насочен към изследване как протеин-протеиновите взаимодействия се запазват от един вид в друг. Тъй като има няколко препятствия при експерименталната идентификация и потвърждаване на данните за интерактомите, би било интригуващо да се разбере PPI, прехвърлен от вид, който е доказан в друг вид [39]. Банката данни STRING е безплатен ресурс за биоинформатика, който съдържа информация, описваща как протеините взаимодействат един с друг като част от няколко пътя. Броят на линиите, свързващи всеки протеинов възел, и стойностите на междинните връзки се използват за идентифициране на междинни възли, представляващи протеини, които играят важни биологични роли и са тясно свързани един с друг. Създаването на мрежа беше извършено с помощта на STRING и софтуерът Cytoscape (http://www.cytoscape.org, достъпен на 29 септември 2021 г.) беше използван за показване на мрежата [40]. Чрез идентифициране на протеин-протеиновите взаимодействия на BPIFA1 сред имунните протеини и ко-експресионен анализ с помощта на STRING версия 9.1 (http://www.string-db.org, достъпен на 29 септември 2021 г.), успяхме да определим допълнително как функционира BPIFA1 на молекулярно ниво.
2.5. Структурен анализ на BPIFA1 протеин
В този анализ изградихме кристалната структура на човешкия протеин BPIFA1, използвайки хомологично моделиране с онлайн инструменти, като швейцарския модел (http://swissmodel.expasy. org, достъпен на 29 септември 2021 г.) [41], I-TESSAR [42] и Phyre2 (http://www.sbg. bio1.ic.ac.uk/phyre2/html, посетен на 29 септември 2021 г.) [43]. Методът на конюгирания градиент и силовото поле на Amber в софтуера UCSF Chimera 1.10.1 бяха използвани за намаляване на сглобения целеви протеин. В допълнение, уеб сървърът ProSA беше използван за оценка на стереохимичните свойства на очакваната структура [22].
For more information:1950477648nn@gmail.com